Свойства клеток и тканей физиология
Все живые клетки обладают раздражимостью, т.е. Способностью реагировать на различные стимулы и переходить из состояния физиологического покоя в состояние активности. Этот процесс сопровождается изменением обмена веществ, а дифференцированные ткани (нервная, мышечная, железистая), осуществляющие специфические функции (проведение нервного импульса, сокращение или выделение секрета), - еще и изменением электрического потенциала.
Содержание
Физиология возбудимых тканей изучает основные закономерности взаимодействия между организмом, его составляющими и действующими факторами внешней среды.
Возбудимые ткани - специально приспособленные к осуществлению быстрых ответных реакций на действие раздражителя нервная ткань, железистая ткань и мышечная ткань.
Человек и животные живут в мире света, звуков, запахов, действия сил гравитации, механических давлений, переменной температуры и прочих сигналов внешней или внутренней среды. Каждый из своего собственного опыта знает, что мы не только способны мгновенно воспринимать эти сигналы (называемые также раздражителями), но и реагировать на них.
Это восприятие осуществляется структурами нервной ткани, а одной из форм реагирования на воспринятые сигналы являются двигательные реакции, осуществляемые мышечными тканями. В настоящей главе будут рассмотрены физиологические основы процессов и механизмов, обеспечивающих восприятие и реагирование организма на разнообразные сигналы внешней и внутренней среды.
Важнейшими специализированными тканями организма, обеспечивающими восприятие сигналов и ответные реакции на действие разнообразных раздражителей, служат нервная и мышечная ткани, которые традиционно называют возбудимыми тканями. Однако истинно возбудимыми в них являются мышечные клетки и нейроны. Клетки же нейроглии, которых в мозге приблизительно в 10 раз больше, чем, не обладают возбудимостью.
Возбудимость - способность клеток реагировать определенным образом на действие раздражителя.
Возбуждение - активный физиологический процесс, ответная реакция возбудимых клеток, проявляющаяся генерацией потенциала действия, его проведением и для мышечных клеток сокращением.
Возбудимость в эволюции клеток развилась из свойства раздражимости, присущей всем живым клеткам, и является частным случаем раздражимости.
Раздражимость - это универсальное свойство клеток отвечать на действие раздражителя изменением процессов жизнедеятельности. Например, нейтрофильные, восприняв своими рецепторами действие специфического сигнала - антигена, прекращают движение в потоке крови, прикрепляются к стенке капилляра и мигрируют в направлении воспалительного процесса в ткани. Эпителий слизистой полости рта на действие раздражающих веществ реагирует увеличением выработки и выделения слизи, а эпителий кожи при воздействии ультрафиолетовых лучей накапливает защитный пигмент.
Возбуждение проявляется специфическими и неспецифическими изменениями, регистрируемыми в клетке.
Специфическим проявлением возбуждения для нервных клеток являются генерация и проведение потенциала действия (нервного импульса) на относительно большие расстояния без уменьшения его амплитуды, а для мышечных клеток - генерация, проведение потенциала действия и сокращение. Таким образом, ключевым показателем возникновения возбуждения является генерация потенциала действия. Признак наличия потенциала действия - перезарядка (инверсия знака заряда).
При этом па короткое время поверхность мембраны вместо положительного, имеющегося в покое, приобретает отрицательный заряд. У клеток, не обладающих возбудимостью, при действий раздражителя разность потенциалов на клеточной мембране может лишь изменяться, но это не сопровождается перезарядкой мембраны.
К неспецифическим проявлениям возбуждения нервных и мышечных клеток относят изменение проницаемости клеточных мембран для различных веществ, ускорение обмена веществ и соответственно увеличение поглощения клетками кислорода и выделения углекислого газа, снижение рН, возрастание температуры клетки и т.д. Эти проявления во многом сходны с компонентами ответной реакции на действие раздражителя невозбудимых клеток.
Возбуждение может возникать под влиянием сигналов, поступающих из внешней среды, из микроокружения клетки, и спонтанно (автоматически) из-за изменения проницаемости клеточной мембраны и обменных процессов в клетке. О таких клетках говорят, что они обладают автоматией. Автоматия присуща клеткам водителя ритма сердца, гладким миоцитам стенок сосудов и кишечника.
В эксперименте можно наблюдать развитие возбуждения при непосредственном воздействии раздражителей на нервную и мышечную ткани. Различают раздражители (сигналы) физической (температура, электрический ток, механические воздействия), химической (, нейромедиаторы, цитокины, факторы роста, вкусовые, пахучие вещества) и физико- химической природы (осмотическое давление, рН).
По признаку биологического соответствия раздражителей специализации сенсорных рецепторов, воспринимающих в организме воздействие этих раздражителей, последние делят на адекватные и неадекватные.
Адекватные раздражители - раздражители, к восприятию которых рецепторы приспособлены и реагируют на малую силу воздействия. Например, адекватными для фоторецепторов и других клеток сетчатки глаза являются кванты света, ответная реакция на которые регистрируется в фоторецепторах сетчатки при поглощении лишь 1-4 квантов.
Неадекватные раздражители не вызывают возбуждения даже при значительной силе воздействия. Лишь при чрезмерных, граничащих с повреждением, силах они могут вызвать возбуждение. Так, ощущение искр света может возникнуть при ударе в область глаза. При этом энергия механического, неадекватного раздражителя в миллиарды раз превышает величину энергии светового раздражителя, вызывающего ощущение света.
Состояния клеток возбудимых тканей
Клетки возбудимых тканей могут находиться в трех различных состояниях (рис. 1). При этом клетки из состояния физиологического покоя могут переходить в активные состояния возбуждения или торможения, и наоборот. Клетки, находящиеся в состоянии возбуждения, могут переходить в состояние торможения, а из состояния торможения - в состояние возбуждения. Скорость перехода различных клеток или тканей из одного состояния в другое значительно различается.
Так, двигательные нейроны спинного мозга могут от 200 до 300 раз в секунду переходить из состояния покоя в состояние возбуждения, тогда как вставочные нейроны - до 1000 раз.
Рис. 1. Взаимосвязь между основными физиологическими состояниями клеток возбудимых тканей
Физиологический покой - состояние, характеризующееся:
- относительно постоянным уровнем обмена процессов;
- отсутствием функциональных проявлений ткани.
Активное состояние возникает под действием раздражителя и характеризуется:
- выраженным изменением уровня обменных процессов;
- проявлениями функциональных отправлений ткани.
Возбуждение - активный физиологический процесс, возникающий под действием раздражителя, способствующий переходу ткани из состояния физиологического покоя к специфической деятельности (генерация нервного импульса, сокращение, секреция). Неспецифические признаки возбуждения:
- изменение заряда мембраны;
- повышение обменных процессов;
- увеличение затраты энергии.
Торможение - активный физиологический процесс, возникающий под действием определенного раздражителя и характеризующийся угнетением или прекращением функциональной активности ткани. Неспецифические признаки торможения:
- изменение проницаемости клеточной мембраны;
- изменение движения ионов через нее;
- изменение заряда мембраны;
- снижение уровня обменных процессов;
- снижение затраты энергии.
Основные свойства возбудимых тканей
Любая живая ткань обладает следующими свойствами: возбудимостью, проводимостью и лабильностью.
Возбудимость - способность ткани отвечать на действие раздражителей переходом в активное состояние. Возбудимость характерна для нервной, мышечной и железистой тканей. Возбудимость обратно пропорциональна силе действующего раздражителя: В = 1/S. Чем больше сила действующего раздражителя, тем меньше возбудимость, и наоборот. Возбудимость зависит от состояния обменных процессов и заряда клеточной мембраны. Невозбудимость = рефрактерность. Наибольшей возбудимостью обладает нервная ткань, затем поперечно-полосатая скелетная и сердечная мышечная ткань, железистая ткань.
Проводимость - способность ткани проводить возбуждение в двух или одном направлении. Показателем проводимости является скорость проведения возбуждения (от 0,5 до 120 м/с в зависимости от ткани и строения волокна). Быстрее всего возбуждение передается по миелинизированному нервному волокну, затем по немиелинезированному волокну, и самой низкой проводимостью обладает синапс.
Функциональная лабильность - способность ткани воспроизводить без искажения частоту ритмически наносимых импульсов. Показателем функциональной лабильности является количество импульсов, которое данная структура может передавать без искажения за единицу времени. Например, нерв - 500-1000 имп/с, мышца - 200-250 имп/с, синапс - 100-120 имп/с.
Роль силы раздражится и времени его действия. Хронаксия - это временная характеристика возбудимости. Зависимость между пороговой интенсивностью раздражения и длительностью называют кривой силы длительности или кривой Гоорвега - Вейсса (рис. 2). Она имеет форму равносторонней гиперболы. На оси абсцисс откладывают время, на оси ординат - пороговую интенсивность раздражения.
Рис. 2. Кривая силы длительности (Гоорвега - Вейсса)
По оси абсцисс отложено время (t); по оси ординат - пороговая интенсивность раздражения (i); 0А - реобаза: 0В - двойная реобаза: ОД - хропаксия; 0Ж- полезное время
Из рис. 2 можно видеть, что при слишком малой величине интенсивности раздражения (менее OA) ответная реакция не возникает при любой его длительности. Отсутствует реакция и при слишком малом времени действия раздражителя (менее ОГ). При интенсивности раздражения, соответствующей отрезку OA, возникает возбуждение при условии большей длительности действия раздражающего импульса.
В пределах времени, определяемого отрезком ОЖ, имеет место зависимость между пороговой интенсивностью и длительностью раздражения: меньшей длительности раздражающего импульса соответствует большая пороговая интенсивность (отрезку ОД соответствует OB, а ОЕ - отрезку ОБ). За пределами этого времени (ОЖ) изменение длительности действия раздражителя уже не влияет на величину порога раздражения.
Наименьшее время, в течение которого проявляется зависимость между пороговой интенсивностью раздражения и его длительностью, получило название полезного времени (отрезок ОЖ). Полезное время является временным показателем возбуждения. По его величине можно судить о функциональном состоянии различных возбудимых образований.
Однако для определения полезного времени необходимо найти несколько точек кривой, для чего требуется наносить множество раздражений. Поэтому большое распространение получило определение другого временного показателя, который ввел в практику физиологических исследований Л. Лап и к (1907). Он предложил для характеристики скорости возникновения процесса возбуждения параметры: реобазу и хронаксию.
Реобаза - это пороговая интенсивность раздражения при большой длительности его действия (отрезок OA);хронаксия - время, в течение которого должен действовать ток, равный двойной реобазе (ОВ), для получения порогового ответа (отрезок ОД). В течение этого времени происходит уменьшение мембранного потенциала до величины, соответствующей критическому уровню деполяризации. Для разных возбудимых образований величина хронаксии неодинакова. Так, хронаксия локтевого нерва человека составляет 0,36 мс, срединного - 0,26 мс, общего сгибателя пальцев - 0,22 мс, а общего разгибателя - 0,58 мс.
Формула М. Вейса
где I - пороговая сила тока; t - время действия раздражителя (с); а - константа, характеризующая постоянное время раздражения с момента, когда кривая переходит в прямую линию, идущую параллельно оси ординат; b - константа, соответствующая силе раздражения при постоянной его длительности, когда кривая переходит линию, идущую параллельно оси абсцисс.
Показатели возбудимости
Для оценки состояния возбудимости у человека и животных исследуют в эксперименте ряд ее показателей, которые указывают, с одной стороны, на какие раздражители реагирует возбудимая ткань, а с другой - как она реагирует на воздействия.
Возбудимость нервных клеток, как правило, выше, чем мышечных. Уровень возбудимости зависит не только от вида клетки, но и от многочисленных факторов, влияющих на клетку и особенно на состояние се мембраны (проницаемости, поляризации и т.д.).
К показателям возбудимости относят следующие.
Порог силы раздражителя - это минимальная величина силы действующего раздражителя, достаточная для инициирования возбуждения. Раздражители, сила которых ниже пороговой, называют подпороговыми, а имеющие силу выше пороговой - над- или сверхпороговыми.
Между возбудимостью и величиной порога силы имеется обратная зависимость. Чем на меньшие по силе воздействия возбудимая клетка или ткань реагирует развитием возбуждения, тем их возбудимость выше.
Возбудимость ткани зависит от ее функционального состояния. При развитии патологических изменений в тканях их возбудимость может существенно понижаться. Таким образом, измерение порога силы раздражителя имеет диагностическую значимость и используется в электродиагностике заболеваний нервной и мышечной тканей. Одним из ее примеров может быть электродиагностика заболеваний пульпы зуба, получившая название электроодонтометрия.
Электроодонтометрия (электроодонтодиагностика) - метод использования электрического тока с диагностической целью для определения возбудимости нервной ткани зубов (сенсорных рецепторов чувствительных нервов пульпы зубов). В пульпе зуба содержится большое количество чувствительных нервных окончаний, реагирующих на определенной силы механические, температурные и другие воздействия.
При электроодонтометрии определяется порог ощущения действия электрического тока. Порог силы электрического тока для здоровых зубов составляет 2-6 мкА. при среднем и глубоком кариесе - 10-15, остром пульпите - 20-40, при гибели коронковой пульпы - 60, при гибели всей пульпы - 100 мкА и более.
Величина пороговой силы раздражения возбудимой ткани зависит от продолжительности воздействия раздражителя.
Это можно проверить в эксперименте при воздействии импульсов электрического тока на возбудимую ткань (нерв или мышцу), наблюдая, при каких значениях силы и продолжительности импульса электрического тока ткань отвечает возбуждением, а при каких значениях возбуждение не развивается. Если продолжительность воздействия будет очень короткой, то возбуждение в ткани может не возникнуть даже при сверхпороговых воздействиях.
Если продолжительность действия раздражителя увеличивать, то ткань начнет реагировать возбуждением на более низкие по силе воздействия. Возбуждение возникнет при наименьшем по силе воздействии, если его длительность будет бесконечно большой. Зависимость между порогом силы и порогом времени раздражения, достаточными для развития возбуждения, описывается кривой "сила - длительность" (рис. 3).
Рис. 3. Кривая "сила-длительность" (соотношения силы и длительности воздействия, необходимые для возникновения возбуждения). Ниже и слева от кривой - соотношения силы и длительности раздражителя, недостаточные для возбуждения, выше и справа - достаточные
Специально для характеристики порога силы электрического тока, широко используемого в качестве раздражителя при исследовании ответных реакций тканей, введено понятие "реобаза". Реобаза - это минимальная сила электрического тока, необходимая для инициирования возбуждения, при длительном его воздействии на клетку или ткань. Дальнейшее удлинение раздражения практически не влияет на величину пороговой силы.
Порог времени раздражения - минимальное время, в течении которого должен действовать раздражитель пороговой силы, чтобы вызвать возбуждение.
Между возбудимостью и величиной порога времени также имеется обратная зависимость. Чем на меньшие по времени пороговые воздействия ткань реагирует развитием возбуждения, тем се возбудимость выше. Величина порогового времени для возбудимой ткани зависит от силы воздействия раздражителя, что видно на рис. 3.
Хронаксия - минимальное время, в течение которого должен действовать раздражитель силой, равной двум реобазам, чтобы вызвать возбуждение (см. рис. 3). Этот показатель возбудимости также применяется для случая использования в качестве раздражителя электрического тока. Хронаксия нервных клеток и волокон скелетных мышц составляет десятитысячные доли секунды, а гладких мышц - в десятки раз больше.
Хронаксия как показатель возбудимости используется для тестирования состояния и функциональных возможностей скелетных мышц и нервных волокон здорового человека (в частности, в спортивной медицине). Определение хронаксии имеет ценность для диагностики ряда заболеваний мышц и нервов, так как при этом возбудимость последних обычно снижается и хронаксия увеличивается.
Минимальный градиент (крутизна ) нарастания силы раздражителя во времени. Это минимальная скорость увеличения силы раздражителя во времени, достаточная для инициирования возбуждения. Если сила раздражителя увеличивается очень медленно, то ткань приспосабливается к его действию и не отвечает возбуждением. Такое приспособление возбудимой ткани к медленно увеличивающейся силе раздражителя называют аккомодацией.
Чем больше минимальный градиент, тем ниже возбудимость ткани и тем более выражена в ней способность к аккомодации. Практическая значимость этого показателя заключается в том, что при проведении различных медицинских манипуляций у человека в ряде случаев можно избежать развития сильных болевых ощущений и шоковых состояний, медленно изменяя скорость нарастания силы и время воздействия.
Лабильность - функциональная подвижность возбудимой ткани. Лабильность определяется скоростью элементарных физико-химических превращений, лежащих в основе одиночного цикла возбуждения. Мерой лабильности является максимальное число циклов (волн) возбуждения, которые может генерировать ткань в единицу времени.
Количественно величина лабильности определяется длительностью протекания одиночного никла возбуждения и длительностью фазы абсолютной рефрактерности. Так, вставочные нейроны спинного мозга могут воспроизводить более 500 циклов возбуждения или нервных импульсов в секунду. У них высокая лабильность. Мотонейроны, контролирующие сокращение мышц, характеризуются более низкой лабильностью и способны генерировать не более 100 нервных импульсов в секунду.
Разность потенциалов (ΔЕ) между потенциалом покоя на мембране (Е 0) и критическим уровнем деполяризации мембраны (Е к). ΔЕ = (Е 0 - Е к) является одним из важнейших показателей возбудимости клетки. Этот показатель отражает физическую сущность порога силы раздражителя. Раздражитель является пороговым в случае, когда он способен сместить такой уровень поляризации мембраны до Е к, при достижении которого на мембране развивается процесс возбуждения.
Чем меньше значение ΔЕ, тем выше возбудимость клетки и тем на более слабые воздействия она будет реагировать возбуждением. Однако показатель ΔЕ мало доступен для измерения в обычных условиях. Физиологическая значимость этого показателя будет рассмотрена при изучении природы мембранных потенциалов.
Законы реагирования возбудимых тканей на раздражение
Характер реагирования возбудимых тканей на действие раздражителей в классической принято описывать законами раздражения.
Закон силы раздражения утверждает, что при увеличении силы надпорогового раздражителя до определенного предела возрастает и величина ответной реакции. Этот закон применим для ответной реакции сокращения целостной скелетной мышцы и суммарной электрической ответной реакции нервных стволов, включающих множество волокон, обладающих разной возбудимостью. Так, сила сокращения мышцы возрастает при увеличении силы воздействующего на нее раздражителя.
Для тех же возбудимых структур применимы закон длительности раздражения и закон градиента раздражения. Закон длительности раздражения утверждает, что чем больше продолжительность надпорогового раздражения, тем больше величина ответной реакции. Естественно, что возрастание ответа идет только до определенного предела. Закон градиента раздражения - чем больше градиент нарастания силы раздражителя во времени, тем больше (до определенного предела) величина ответной реакции.
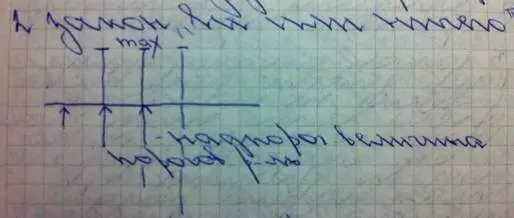
Закон все или ничего утверждает, что при действии подпороговых раздражителей возбуждение не возникает, а при действии порогового и надпороговых раздражителей величина ответной реакции, обусловленной возбуждением, остается постоянной. Следовательно, уже на пороговый раздражитель, возбудимая структура отвечает максимально возможной для данного функционального состояния реакцией.
Этому закону подчиняются одиночное нервное волокно, на мембране которого в ответ на действие порогового и надпорогового раздражителей генерируется потенциал действия одинаковых амплитуды и длительности.
Закону "все или ничего" подчиняется реакция одиночного волокна скелетной мышцы, которое отвечает одинаковыми по амплитуде и продолжительности потенциалами действия и одинаковой силой сокращения как на пороговый, гак и на разные по силе надпороговые раздражители. Этому закону подчиняется также характер сокращения целостной мышцы желудочков сердца и предсердий.
Закон полярного действия электрического тока (Пфлюгера) постулирует, что при действии на возбудимые клетки постоянного электрического тока в момент замыкания цепи возбуждение возникает в месте приложения катода, а при размыкании - в месте контакта с анодом. Само по себе длительное действие постоянного тока на возбудимые клетки и ткани не вызывает в них возбуждения.
Невозможность инициирования возбуждения таким током можно рассматривать как следствие их аккомодации к неизменяющемуся во времени раздражителю с нулевой крутизной нарастания.
Однако поскольку клеток поляризованы и на их внутренней поверхности имеется избыток отрицательных зарядов, а на внешней - положительных, то в области приложения к ткани анода (положительно заряженного электрода) под действием электрического поля часть положительных зарядов, представленных катионами К+ будет перемещаться внутрь клетки и их концентрация на внешней поверхности станет меньше.
Это приведет к понижению возбудимости клеток и участка ткани под анодом. Обратные явления будут наблюдаться под катодом.
Воздействие на живые ткани электрическим током и регистрация биоэлектрических токов часто используются в медицинской практике для диагностики и лечения и особенно при проведении экспериментальных физиологических исследований. Это вызвано тем, что величины биотоков отражают функциональное состояние тканей. Электрический ток обладает лечебным действием, легко дозируем по величине и времени воздействия, и его эффекты могут наблюдаться при силах воздействия, близких к естественным величинам биотоков в организме.
Элементарной биологической единицей является клетка. Клетка - это структурно-функциональная единица органа (ткани), способная самостоятельно существовать, расти, размножаться, активно реагировать на раздражение.
В каждой клетке есть "органы":
1. Ядро
2. Цитоплазма
3. Оболочка.
Кроме "органов" в цитоплазме клетки имеются образования, выполняющие определенные функции - это органоиды или органеллы.
Некоторые органоиды есть во всех видах клеток, они называются органоидами общего порядка. К ним относятся:
Митохондрии
Аппарат Гольджи
Рибосомы
Клеточный центр
Эндоплазматическая сеть
Все эти образования выполняют определенную функцию.
Ядро - регулирует жизнедеятельность клетки, осуществляет передачу генетической информации, синтез белка и рецепцию биологически активных веществ.
Цитоплазма участвует в процессах метаболизма и поддержании постоянства внутренней среды клетки.
Эндоплазматическая сеть является главным депо ионов Са
Рибосомы синтезируют белки
Митохондрии участвуют в генерации и аккумуляции энергии
Аппарат Гольджи (пластинчатый комплекс) участвует в секреции биологически активных веществ.
Лизосомы осуществляют переваривание поглощенных клетками питательных веществ.
Все ткани человеческого организма являются возбудимыми. Для них характерны 4 свойства:
- в о з б у д и м о с т ь
- п р о в о д и м о с т ь
- р е ф р а к т е р н о с т ь
- л а б и л ь н о с т ь
Для мышечной ткани характерна также сократимость.
Возбудимость - способность ткани отвечать на раздражение изменением ряда своих свойств. Показатель возбудимости - порог раздражения. Это минимальное по силе раздражение, способное вызвать видимую ответную реакцию ткани.
Проводимость - способность ткани проводить возбуждение по всей своей длине. Показатель проводимости - скорость проведения возбуждения. Проводимость напрямую зависит от возбудимости ткани: чем выше возбудимость, тем выше проводимость, так как быстрее возбуждается расположенный рядом участок ткани.
Рефрактерность - способность ткани терять или снижать возбудимость в процессе возбуждения. При этом в ходе ответной реакции ткань перестает воспринимать раздражитель. Показатель рефрактерности (рефрактерный период ) - время, в течение которого возбудимость ткани снижена. Рефрактерный период тем короче, чем выше возбудимость ткани
Лабильность - способность ткани генерировать определенное число волн возбуждения в единицу времени в точном соответствии с ритмом наносимого раздражения. Лабильность определяется продолжительностью рефрактерного периода (чем короче рефрактерный период, тем больше лабильность).
Сократимость - способность мышцы отвечать сокращением на раздражение.
Раздражитель - фактор, способный вызвать ответную реакцию возбудимых тканей. В условиях физиологического эксперимента в качестве раздражителя чаще всего используют электрический ток. Он легко дозируется, мало травмирует ткань и близок к раздражителям, имеющим место в живых организмах.
Хронаксия - наименьший промежуток времени, в течение которого ток силой в 2 реобазы (пороговая сила раздражителя для электрического тока) вызывает в ткани возбуждение.
Процесс возбуждения связан с наличием в мембране электрически (для ионов кальция и хлора) и химически (для ионов натрия и калия) управляемых каналов, которые могут открываться в ответ на соответствующее раздражение клетки.
Структурной основой биологической мембраны является двойной слой фосфолипидов, в который встроены мембранные белки.
Мембранные белки в функциональном отношении делятся на 4 класса: "насосы", каналы, рецепторы и ферменты. Ионоселективные каналы представляют собой пути переноса заряженных молекул и ионов. Через каналы в клетку проникают и лекарственные вещества. Для каждого катиона и аниона существует свой собственный канал. Рецепторы мембран представлены белковыми молекулами, которые "узнают" то или иное биологически активное вещество, контактируют с ним и передают в клетку информацию о характере биохимических взаимодействий.
Существует два основных вида транспорта через мембрану клетки: пассивный (фильтрация, диффузия, осмос) и активный (работа мембранных белковых "насосов")
Пассивный транспорт. Фильтрация осуществляется через мембранные белковые каналы - поры, зависит от разности давлений снаружи и внутри клетки и проницаемости мембраны для жидкости и низкомолекулярных веществ. Диффузия - пассивное передвижение молекул или ионов по градиенту концентрации (из области высокой концентрации в область низкой). Осмос представляет собой частный случай диффузии растворителя через полупроницаемую мембрану, не пропускающую растворенные вещества.
Пассивный транспорт не требует затрат энергии.
Активный транспорт. Это универсальный для всех видов мембран перенос веществ против концентрационных или электрохимических градиентов (из области низкой концентрации в область высокой). Активный транспорт осуществляется с обязательной затратой энергии, образующейся при расщеплении (окислительное фосфорилирование) аденозинтрифосфорной кислоты (АТФ).
Разновидностью активного транспорта, связанной с деятельностью самой клетки, является микровезикулярный транспорт (пиноцитоз, экзоцитоз и фагоцитоз). При пиноцитозе происходит активное поглощение клеткой жидкости из окружающей среды с формированием пузырьков и последующим переносом их через цитоплазму. Процесс слияния пузырьков с мембраной клетки и выделение клеткой вещества в виде секреторных гранул или вакуолей называется экзоцитозом. Явление фагоцитоза заключается в способности клеток активно захватывать и поглощать микроорганизмы, разрушенные клетки и инородные частицы.
Все ткани организма могут находиться в двух состояниях:
- с о с т о я н и и о т н о с и т е л ь н о г о ф и з и о л о г и ч е с к о г о п о к о я
- с о с т о я н и и а к т и в н о с т и.
Состояние активности наблюдается при раздражении ткани. Существует 2 вида активного состояния тканей: возбуждение и торможение. Возбуждение - ответная реакция ткани на раздражение, характеризующаяся повышением функций ткани. Торможение - ответная реакция ткани на раздражение, характеризующаяся снижением функций ткани.
Биологический потенциал - это электрический процесс, возникающий в возбудимых тканях в процессе их жизнедеятельности. В состоянии относительного физиологического покоя регистрируется потенциал покоя. В образовании потенциала принимают участие 4 вида ионов:
- к а т и о н ы н а т р и я (п о л о ж и т е л ь н ы й з а р я д )
- к а т и о н ы к а л и я (п о л о ж и т е л ь н ы й з а р я д )
- а н и о н ы х л о р а (о т р и ц а т е л ь н ы й з а р я д )
- а н и о н ы о р г а н и ч е с к и х с о е д и н е н и й (о т р и ц а т е л ь н ы й з а р я д ).
Эти ионы в свободном состоянии находятся во вне-и внутриклеточной жидкости, однако их концентрация по обе стороны клеточной мембраны различна. Во внеклеточной жидкости высока концентрация ионов натрия и хлора, во внутриклеточной жидкости - ионов калия и органических соединений.
В развитии возбуждения выделяют 4 этапа:
1) предшествующее возбуждению состояние покоя (статическая поляризация);
2) деполяризация;
3) реполяризация
4) гиперполяризация.
Статическая поляризация. В состоянии относительного покоя наружная поверхность клетки всегда электроположительна по отношению к внутренней, т.е. поляризована. Эта разность потенциалов, равная ~ 60мВ, называется потенциалом покоя, или мембранным потенциалом (МП). Его величину можно измерить, введя внутрь клетки микроэлектрод (стеклянный капилляр, заполненный проводящим ток раствором).Второй электрод помещается снаружи.
Луч на экране осциллографа показывает, что до прокола микроэлектродом мембраны разность потенциалов между электродами была равна нулю.В момент прокола обнаружена разность потенциалов, указывающая, что внутренняя сторона мембраны заряжена электроотрицательно по отношению к ее наружной поверхности. В разных тканях МП равен от 30 до 90 мВ.
В состоянии относительного физиологического покоя клеточная мембрана хорошо проницаема для катионов калия, чуть хуже для анионов хлора, практически непроницаема для катионов натрия и совершенно непроницаема для анионов органических соединений.
В покое ионы калия без затрат энергии выходят в область меньшей концентрации (на наружную поверхность клеточной мембраны), неся с собой положительный заряд. Ионы хлора проникают внутрь клетки, неся отрицательный заряд. Ионы натрия продолжают оставаться на наружной поверхности мембраны, еще больше усиливая положительный заряд.
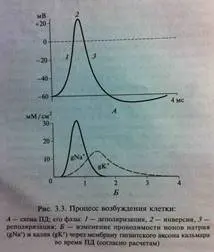
Деполяризация - сдвиг МП в сторону его уменьшения. Под действием раздражения открываются "быстрые" натриевые каналы, вследствие чего ионы Na лавинообразно поступают в клетку. Переход положительно заряженных ионов в клетку вызывает уменьшение положительного заряда на ее наружной поверхности и увеличение его в цитоплазме.
В результате этого сокращается трансмембранная разность потенциалов, значение МП падает до 0, а затем по мере дальнейшего поступления Na в клетку происходят перезарядка мембраны и инверсия ее заряда (поверхность становится электроотрицательной по отношению к цитоплазме) - возникает потенциал действия (ПД).
Потенциал действия - это сдвиг мембранного потенциала, возникающий при действии раздражителя, по силе превышающего порог возбудимости данной ткани. Электрографическим проявлением деполяризации является спайк, илипиковый потенциал.
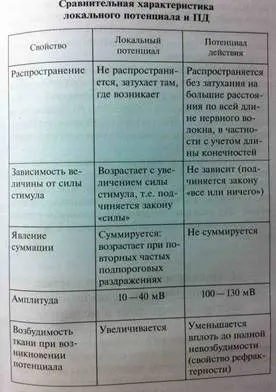
При изучении возникновения потенциала действия в качестве раздражителя используют электрический ток. В зависимости от силы различают подпороговый (недостаточный для возникновения возбуждения), пороговый (достаточный) и надпороговый (чрезмерный) ток. Несмотря на то, что подпороговый ток не вызывает возбуждения, он все-таки деполяризует мембрану. Эта деполяризация называется локальным ответом (она не распространяется). Если сила раздражения достаточная (пороговая), то деполяризация достигает определенной величины, которая называется критическим уровнем деполяризации.
Реполяризация - восстановление исходного уровня МП. При этом ионы натрия перестают проникать в клетку, проницаемость мембраны для калия увеличивается, и он достаточно быстро выходит из нее. В результате заряд клеточной мембраны приближается к исходному. Электрографическим проявлением реполяризации является отрицательный следовой потенциал.
Гиперполяризация - увеличение уровня МП. Вслед за восстановлением исходного значения МП (реполяризация) происходит его кратковременное увеличение по сравнению с уровнем покоя, обусловленное повышением проницаемости калиевых каналов и каналов для Cl. В связи с этим поверхность мембраны приобретает избыточный по сравнению с нормой положительный заряд, а уровень МП становится несколько выше исходного. Электрографическим проявлением гиперполяризации является положительный следовой потенциал. На этом заканчивается одиночный цикл возбуждения.
Изменение возбудимости в различные фазы одиночного цикла возбуждения.
Если принять уровень возбудимости в условиях физиологического покоя за норму, то в ходе развития одиночного цикла возбуждения можно наблюдать ее циклические колебания. Так, в период развития начальной деполяризации на очень короткое время возбудимость незначительно повышается по сравнению с исходной. Во время развития полной деполяризации и инверсии заряда возбудимость падает до 0. Время, в течение которого отсутствует возбудимость, называется периодом абсолютной рефрактерности. В это время даже очень сильный раздражитель не может вызвать возбуждение ткани.
В фазе восстановления МП возбудимость также начинает восстанавливаться, но она еще ниже исходного уровня. Время восстановления ее от 0 до исходной величины называется периодом первичной относительной рефрактерности. Ткань может ответить возбуждением только на сильные, надпороговые, раздражения.
Вслед за периодом относительной рефрактерности наступает короткий период экзальтации - повышенной (по сравнению с исходной) возбудимости. По времени он соответствует процессу реполяризации.
Заключительный этап одиночного цикла возбуждения - повторное снижение возбудимости ниже исходного уровня (но не до 0), называемое периодом вторичной относительной рефрактерности. Он совпадает с развитием гиперполяризации мембраны. Возбуждение может возникнуть только в том случае, если сила раздражения значительно превысит пороговую. После этого возбудимость восстанавливается, и клетка готова к осуществлению следующего цикла возбуждения.
Механизм проведения возбуждения по нервному волокну.
Основная функция нервных волокон - передача нервного импульса. Скорость проведения импульса по нервному волокну высокая и зависит от наличия миелиновой оболочки и диаметра волокна. Чем больше диаметр, тем выше скорость.
Нервные волокна проводят возбуждение в обоих направлениях. Проведение импульсов по нервному волокну изолированное. Нервные волокна практически не утомляются. Возбуждение по нервным волокнам проводится без затухания.
Нервные волокна представляют собой отростки нейронов. Существует 2 основных вида волокон: миелиновые и безмиелиновые.
Миелиновые нервные волокна, в отличие от безмиелиновых, покрыты одним или несколькими слоями клеток. Эта оболочка защищает волокно от повреждения, способствует его питанию, а также намного увеличивает скорость передачи нервного импульса. Через равные промежутки (в среднем через 1 мм) миелиновая оболочка прерывается, оставляя небольшие участки отростка нервной клетки - перехваты Ранвье.
Нервные волокна подразделяют на группы:
А - нервные волокна с самой толстой миелиновой оболочкой. Наиболее высокая скорость передачи нервного импульса.
В - миелиновая оболочка тоньше, скорость проведения возбуждения ниже
С - безмиелиновые волокна с относительно низкой скоростью передачи импульса.
При раздражении нервного волокна в его участке, непосредственно соприкасающемся с раздражителем, возникает потенциал действия. Изменение заряда клеточной мембраны ведет к возникновению разности потенциалов между возбужденным и невозбужденным участками нервного волокна и следовательно к появлению электрического тока, направленного от возбужденного участка к невозбужденному.
В миелиновых волокнах импульс возникает только в перехватах Ранвье. При возбуждении каждый следующий перехват усиливает нервный импульс, а потому он не только не затухает в процессе передачи, но может "перепрыгивать через один или несколько перехватов. Это ведет к очень быстрому движению импульса по нервному волокну.
В безмиелиновых волокнах нервный импульс распространяется волнообразно, последовательно возбуждаются небольшие участки размером в несколько микрометров. Возбуждение распространяется гораздо медленнее, чем по миелиновым волокнам.
Физиология мышц.
У позвоночных и человека три вида мышц: 1) поперечнополосатые мышцы скелета, 2) поперечнополосатая мышца сердца - миокард и 3) гладкие мышцы, образующие стенки полых внутренних органов и сосудов.
Анатомической и функциональной единицей скелетных мышц является нейромоторная единица - двигательный нейрон и иннервируемая им группа мышечных волокон.
Основные функции мышечной ткани:
- д в и г а т е л ь н а я - о б е с п е ч е н и е д в и ж е н и я
- с т а т и ч е с к а я - о б е с п е ч е н и е ф и к с а ц и и, в т о м ч и с л е и в о п р е д е л е н н о й п о з е
- р е ц е п т о р н а я - в м ы ш ц а х и м е ю т с я р е ц е п т о р ы, п о з в о л я ю щ и е в о с п р и н и м а т ь с о б с т в е н н ы е д в и ж е н и я
- д е п о н и р у ю щ а я - в м ы ш ц а х з а п а с а ю т с я в о д а и н е к о т о р ы е п и т а т е л ь н ы е в е щ е с т в а.
Физиологические свойства скелетных мышц:
- В о з б у д и м о с т ь.
- П р о в о д и м о с т ь
- Р е ф р а к т е р н о с т ь
- Л а б и л ь н о с т ь
- С о к р а т и м о с т ь - с п о с о б н о с т ь м ы ш е ч н о г о в о л о к н а и з м е н я т ь с в о ю д л и н у и с т е п е н ь н а п р я ж е н и я в о т в е т н а р а з д р а ж е н и е п о р о г о в о й с и л ы.
Механизмы мышечного сокращения и расслабления.
Поперечно-полосатая скелетная мышца состоит из длинных волокон - миофибрилл, внутри которых располагаются нити сократительных белков - а ктина и миозина. Нити миозина толстые и не смещаются, из актина образуются тонкие нити, способные к смещению. Нити актина покрыты слоем белка тропонина, препятствующего их взаимодействию с миозином. Нити сократительных белков окружены цитоплазмой (саркоплазмой).
При возбуждении мышцы открываются многочисленные каналы в мембране саркоплазматической сети, через которые в саркоплазму выходят ионы кальция. Они взаимодействуют с белком тропонином, освобождая от него нити актина. Кроме того, кальций стимулирует распад молекул АТФ, высвобождая большое количество энергии, за счет которой актин взаимодействует с миозином - нити актина как бы вдвигаются в промежутки между нитями миозина, и все мышечное волокно сокращается.
Для расслабления мышцы тоже требуется энергия в виде молекул АТФ. За счет этой энергии идет работа кальциевого насоса, удаляющего ионы кальция из саркоплазмы. В результате освободившиеся молекулы тропонина блокируют актин, препятствуя его взаимодействию с миозином. Нити снова расходятся, мышечное волокно расслабляется.
При изотоническом сокращении изменяется длина мышечного волокна без изменения тонуса. Такое сокращение происходит в том случае, когда мышца не перемещает груз. При изометрическом сокращении возрастает напряжение мышечного волокна без изменения его длины. Такое сокращение мышцы можно получить при попытке поднять непосильный груз. В целом организме сокращения мышц всегда имеют смешанный характер, т. е. происходит изменение и длины, и напряжения мышцы.
Сила мышцы определяется максимальным грузом, который мышца в состоянии поднять.
Работа мышцы определяется произведением величины поднятого груза на высоту подъема.
В зависимости от частоты наносимого раздражения может возникнуть одиночное или слитное (тетаническое) сокращение.
Одиночное мышечное сокращение. При раздражении мышцы одиночным импульсом возникает одиночное мышечное сокращение, в котором выделяют три фазы:
- л а т е н т н ы й п е р и о д - в р е м я о т м о м е н т а р а з д р а ж е н и я д о н а ч а л а с о к р а щ е н и я; в э т о в р е м я в м ы ш ц е п р о и с х о д я т б и о х и м и ч е с к и е и б и о ф и з и ч е с к и е п р о ц е с с ы, о д н и м и з п р о я в л е н и й к о т о р ы х я в л я е т с я П Д.
- ф а з а с о к р а щ е н и я (ф а з а у к о р о ч е н и я )
- ф а з а р а с с л а б л е н и я.
Амплитуда одиночного сокращения мышцы зависит от количества сократившихся в этот момент миофибрилл. Возбудимость отдельных групп волокон различна, поэтому пороговая сила тока вызывает сокращение лишь наиболее возбудимых мышечных волокон. Амплитуда такого сокращения минимальна.
При увеличении силы раздражающего тока в процесс возбуждения вовлекаются и менее возбудимые группы мышечных волокон; амплитуда сокращений суммируется и растет до тех пор, пока в мышце не останется волокон, не охваченных процессом возбуждения. В этом случае регистрируется максимальная амплитуда сокращения, которая не увеличивается, несмотря на дальнейшее нарастание силы раздражающего тока.
Тетаническое сокращение. В естественных условиях к мышечным волокнам поступают не одиночные, а ряд нервных импульсов, на которые мышца отвечает длительным, тетаническим сокращением, или тетанусом. К тетаническому сокращению способны только скелетные мышцы.
Различают два вида тетануса: зубчатый и гладкий. Если каждый последующий импульс возбуждения поступает к мышце в тот период, когда она находится в фазе сокращения, то возникает гладкий тетанус, а если в фазу расслабления - зубчатый тетанус.
Гладкий тетанус - нормальное рабочее состояние скелетных мышц обусловливается поступлением из ЦНС нервных импульсов с частотой 40-50 в 1с.
Зубчатый тетанус возникает при частоте нервных импульсов до 30 в 1с. Если мышца получает 10-20 нервных импульсов в 1с, то она находится в состоянии мышечного тонуса, т.е. умеренной степени напряжения.
При сокращении мышцы химическая энергия АТФ превращается в тепловую и механическую. При сокращении мышцы выделяется тепло. Различают две фазы теплопродукции - начальную (во время сокращения) и отсроченную. Начальная фаза зависит от химических процессов, которые переводят мышцу из покоя в активное состояние. Происходит она в анаэробных условиях. Вторая фаза связана с процессами, которые обеспечивают ресинтез АТФ (преимущественно гликолиз и окислительное фосфорилирование). Длительная (на протяжении нескольких часов) мышечная работа обеспечивается за счет окисления липидов.
Утомление мышц. При длительной или интенсивной мышечной работе развивается утомление. Признаками его являются снижение амплитуды сокращений, увеличение их латентных периодов, удлинение фазы расслабления и, наконец, отсутствие сокращений при продолжающемся раздражении.
Нарушение возбудимости и сократимости мышечного волокна в первую очередь обусловлено нехваткой энергии, вследствие того, что молекулы АТФ не успевают восстанавливаться. Утомление быстрее развивается при интенсивной мышечной работе и медленнее при длительной относительно малоинтенсивной работе.
Гладкие мышцы. Гладкие мышцы образуют стенки (мышечный слой) внутренних органов и кровеносных сосудов. Гладкие мышцы менее возбудимы, чем поперечнополосатые. Возбуждение по ним распространяется с небольшой скоростью - 2-15 см/с. В отличие от нервных волокон и волокон поперечнополосатых мышц, возбуждение в гладких мышцах может передаваться с одного волокна на другое.
Особенностью гладких мышц является их способность осуществлять относительно медленные движения и длительные тонические сокращения. Медленные, имеющие ритмический характер, сокращения гладких мышц желудка, кишечника, мочеточников и других органов обеспечивают перемещение содержимого этих органов. Длительные тонические сокращения гладких мышц особенно хорошо выражены в сфинктерах полых органов, которые препятствуют выходу содержимого этих органов. Благодаря малой скорости сокращения, гладкие мышцы хорошо приспособлены к длительным сокращениям с небольшой затратой энергии и без утомления.
Важным свойством гладких мышц является их пластичност ь, т. е. способность сохранять приданную им при растяжении длину. Это свойство имеет большое значение для нормального функционирования полых органов. Благодаря высокой пластичности гладкая мышца может быть полностью расслаблена как в укороченном, так и в растянутом состоянии. Так, например, пластичность мышц мочевого пузыря по мере его наполнения предотвращает избыточное повышение давления внутри его.
Характерной особенностью гладких мышц является ихспособность к автоматическойдеятельности, которая имеет миогенное происхождение и возникает в мышечных клетках, которые выполняют функцию водителя ритма. Автоматизм гладких мышечных волокон желудка, кишечника, матки, мочеточников проявляется их способностью ритмично сокращаться при отсутствии внешних раздражений, без воздействия нервных импульсов.
Адекватным раздражителем для гладких мышц является их быстрое и сильное растяжение, что имеет большое значение для функционирования многих гладкомышечных органов (мочеточник, кишечник и другие полые органы).
Гладкие мышцы иннервируются симпатическими и парасимпатическими вегетативными нервами, которые, как правило, оказывают противоположное влияние на их функциональное состояние.
Філімонов В.І. "Фізіологія людини" стор. 19-61
Общая физиология возбудимых тканей
Первый нуклеотид в триплете берётся из левого вертикального ряда,
второй - из верхнего горизонтального ряда и третий - из правого вертикального. Там, где пересекутся линии, идущие от всех трёх нуклеотидов, и находится искомая аминокислота.
Конец формы
Общая физиология возбудимых тканей
1. Возбудимость - способность клетки генерировать ПД при ее раздражении.Раздражимость - свойство живой материи активно изменять свое состояние при действии раздражителя.Раздражитель - любое изменение внешней или внутренней среды, воспринимаемое клетками и вызывающее ответную реакцию. Возбудимые ткани - только те клетки, которые генерируют ПД, т.е. клетки мышечной и нервной ткани.
Невозбудимые - эпителиальная и соединительная, клетки этих тканей не генерируют ПД под действием раздражителя. Виды раздражителей: внешние и внутренние, адекватные и неадекватные, по природе химические и физические. Открытие животного электричества Гальвани:
1 опыт - подвешивал препарат обнаженных задних лапок лягушек с помощью медного крючка на железной решетке, всякий раз при касании решетки мышцы сокращались, он высказал предположение, что сокращение мышц является следствием воздействия на них электричества, источником которого являются "животные ткани" - мышцы и нервы. Однако Вольта предположил, что это электричество возникает при взаимодействии двух разнородных металлов(медь и железо) с тканями лягушки. И Гальвани поставил 2 опыт
2 опыт - нерв нервно-мышечного препарат набрасывался на мышцу стеклянным крючком так, чтобы он касался поврежденного и неповрежденного участков, в этом случае мышцы тоже сокращалась, именно этот опыт Гальвани считал абсолютным доказательством существования "животного электричества". Мембранный потенциал покоя (ПП) -разность электрических потенциалов между внутренней средой и наружней средой клетки. Параметры ПП: -40 -90мВ
Непосредственная причина возникновения ПП одинаковая концентрация анионов и катионов вне и внутри клетки. Значение ПП - влияет на транспорт веществ, обеспечивает возникновение ПД. Механизм формирования: концентрация К внутри клетки примерно в 40 раз больше, чем вне клетки, концентрация Na вне клетки в 12 раз больше, чем внутри, ионов Cl вне клетки в 20 раз больше, чем внутри клетки.
2. ПД- быстрое колебание мембранного потенциала вследствие диффузии ионов внутрь и из клетки. Механизм возникновения: все фазы ПД развиваются вторично активно за счет
заранее запасенной энергии(в результате постоянной работы ионных насосов). Фазы подразделяются по изменению величины и знаку заряда клетки.
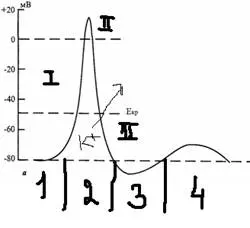
1 фаза- деполяризация - снижение заряда клетки до нуля. Развивается под действием деполяризирующего раздражителя(электрический ток, локальное возбуждение) Nа начинает поступать в клетку при достижении порогового потенциала -40мВ, когда деполяризация достигает критического уровня открывается огромное количество электроуправляемых Nа каналов, в итоге мембранный потенциал изчезает (равен 0)
2 фаза - инверсия - изменение знака заяда клетки на противоположный. Две части - восходящая и нисходящая. Восходящая обеспечена в основном входом натрия в клетку, поэтому количество положительных ионов превышает количество отрицательных, заряд внутри становится положительным, а снаружи отрицательным.
Нисходящая - начинается приблизительно через 1 секунду после начала деполяризции, рост ПД прекращается из-за закрытия натриевых каналов и открытия калиевых.
Поскольку К находится преимущественно внутри клетки, он быстро выходит из клетки согласна концентрационному градиенту, из-за этого снижается количество число положительно заряженных ионов и заряд клетки снова начинает уменьшаться, так продолжается до полного исчезновения положительного заряда внутри клетки.
3 фаза- реполяризация - восстановление ПП. Проницаемость клеточной мембраны все еще высока для К, он продолжает выходить из клетки по концентрационному градиенту, поскольку клетка внутри имеет снова отрицательный заряд, электрический градиент препятствует выходу К из клетки. Параметры ПД: 80-120МВ. Значение ПД: обмен информации между клетками, сигнализация организма об изменении вн среды, запуск процессов хранения информации, формирование сигнала приказа к работе клетки.
Следовые явления: следовая гиперполяризация - следствие еще сохраняющейся повышенной проницаемости клеточной мембраны для К. Ворота К еще не полностью закрыты, поэтому он продолжает выходить из клетки согласно концентрационному градиенту, что и приводит в гиперполяризации. Следовая деполяризация - возможно, связана с кратковременным повышением проницаемости клеточной мембраны для Na и входом его в клетку согласно концентрационному и электрическому градиентам.
3. Возбудимость клетки в разные фазы ПД.
1 фаза - кратковременное повышение возбудимости - в начале развития ПД, когда уже возникла частичная деполяризация, если деполяризация не достигает критического уровня, то регистрируют локальный потенциал.
2 фаза - абсолютная рефрактерная - полная невозбудимость клетки, соответствует пику Пд и продолжается 1-2милисекунду, В этот момент клетка не отвечает на раздражение любой силы, это обусловлено полностью открытыми натриевыми каналами, а те ворота что еще не открыты открываются под действием деполяризации.
3 фаза - относительная рефрактерность - период восстановления возбудимости клетки, когда сильно раздражение может вызвать новое возбуждение. Пониженная возбудимость как следствие все еще повышенной проницаемости для К и избыточным его выходом из клетки, так как выход К препятствует деполяризации клетки.
4 фаза - экзальтация - период повышенной возбудимости. Соответствует следовой деполяризации, Пд можно вызвать достаточно слабым раздражителем.
Скорость протекания фазовых изменений определяет ее лабильность.
Закон "все или ничего" - по этому закону работает сердечная мышца, подпороговые раздражители не вызывают ответной реакции "ничего", на пороговый раздражитель возникает максимальная ответная реакция "все". Закон неабсолютен, т.к. во-первых, на раздражители подпороговой силы не возникает видимого ответа, но в ткани происходит изменение ПП в виде местного возбуждения. Во-вторых, сердечная мышца, растянутая кровью, при наполнении ею камер сердца реагирует по этому закону, но амплитуда ее сокращения будет увеличиваться по сравнению с сокращением сердечной мышцы, нерастянутой кровью.
4. Критерии для оценки возбудимости тканей: 1. Пороговый потенциал - минимальная величина, на которую надо уменьшить ПП, чтобы вызвать возбуждение в виде ПД. Пороговый потенциал и возбудимость находятся в обратных соотношениях - небольшая величина порогового потенциала свидетельствует о высокой возбудимости клетки.
2. пороговая сила - наименьшая сила раздражителя, способная вызвать возбуждение, при неограниченнии времени ее действия. Реобаза - наименьшая сила электрического тока, способная вызвать импульсное возбуждение при неограниченнии времени ее действия. Если возбудимость ткани высока, реобаза мала. Пороговая сила не зависит от времени ее действия - она зависит только от состояния возбудимости ткани.
3. Пороговое время - это минимальное время в течении которого должен действовать на ткань раздражитель пороговой силы, чтобы вызвать ее возбуждение, пороговое время также называют полезным временем, чаще используют не его, а хронаксию - наименьшее время, в течении которого должен действовать электрический ток в две реобазы, чтобы вызвать возбуждение.
Лабильность- скорость протекания одного цикла возбуждения, т.е. ПД. Мера лабильности - максимальное число ПД, которое ткань может произвести за 1 секунду. Лабильность ткани понижается при длительном бездействии организма и при утомлении, а также в случае нарушения иннервации. Лабильность нервного волокна 200-40 импульсов в сек., мышечного 100-200, нервно-мышечного 30-50 имп в сек.
В эксперименте лабильность исследуют в процессе регистрации максимального числа ПД, которое может воспроизвести клетка при увеличении частоты ритмического раздражения. Чем меньше период рефрактерности, тем выше лабильность и наоборот.
5. Нервное волокно - это отростки нейронов, с помощью которых осуществляется связь нейронов между собой, а также с иннервируемыми клетками и рецепторами. Имеются два типа нервных волокон миелиновые и безмиелиновые. Оболочку безмиелиновых волокон составляют леммоциты(швановские клетки), в которые погружены осевые цилиндры нейронов. Оболочку миелиновых волокон в периферической нервной системе леммоциты, а в ЦНС - олигодендроциты.
В миелиновых волокнам мезаксон удлиняется и закручивается вокруг осевого цилиндра, образуя слой миелина вокруг осевого цилиндра. Миелиновая оболочка через равные учатски прерывается, эти перерывы носят название перехваты Ранвье, участки между перехватами - межузловые сегменты. Классификация нервных волокон по Эрлангеру и Гессеру: волокна типа А и В являются миелиновыми, С безмиелиновыми.
Волокна А делят на 4 подгруппы - α,β,γ,δ (альфа, бета, гамма, дельта) - это афферентные и эфферентные волокна периферической НС. Волокна типа В преганглионарные волокна ВНС, волокна типа С - постганглионарные волокна ВНС, афферентные волокна от обонятельных, некоторых болевых, тепловых, висцеральных рецепторов. Скорость проведения возбуждения, лабильность, возбудимость понижается от А до С.
Для передачи возбуждения на большие расстояния необходимо формирование ПД, проведение возможно лишь в случае наличия на пути проведения потенциалуправляемых ионных каналов, ответственных за формирование новых ПД.
В процессе проведения ПД можно выделить два этапа - этап распространения электрического поля, снижающего мембранный потенциал, и этап генерации новых ПД в новых участках нервного волокна.
Непрерывное проведение ПД - только в безмиелиновых волокнах, равномерное распространение ионных каналов по всей длине волокна, центральный участок нервного волокна возбуждается выходящим током от стимулятора, возникает 1 ПД, участок перезаряжается, а соседний участок все еще заряжен - ,возникают локальные токи между возбужденным и невозбужденным участками, они вызывают деполяризацию мембраны до Екритического, лавинообразно начинают открываться каналы для Nа, возникают новые ПД в новых участках.
Локальные токи распространяются на ограниченные расстояния за счет электрического сопротивления, когда в соседних участках возникнут новые ПД, они вызовут вновь локальный скачок, возникнут новые ПД на соседних участках.
Скачкообразное проведение ПД - характерно для миелинизированных волокон - миелин закрывает все ионные каналы на поверхности нервного волокна, кроме перехватов Ранвье, резко увеличено электрическое сопротивление нервного волокна, локальные токи ослабляются значительно меньше и длина скачка возрастает, скорость значительно больше, за счет того что перехваты способны возбуждаться за счет самых слабых локальных токов.
Участки между перехватами выполняют роль изолятора, там ПД не возникают. Характеристика проведения возбуждения по нервному волокну:
1. Двустороннее проведение возбуждения - если в эксперименте нанести раздражение в центре нервного волокна, то возбуждение регистрируется как в проксимальном, так и в дистальном отделах.
2. Изолированное проведение возбуждения - изолированное поле ПД каждого волокна гасится межклеточной жидкостью и оболочкой нервных волокон, оно обеспечивает точное афферентное и эфферентное влияние разнородных волокон нерва.
3. Большая скорость проведения возбуждения - достигает 130м/с в Аα, для сравнения в капиллярах 0,5мм/с, эта скорость обеспечивает быстрое влияние на другие нейроны и рабочие органы, а также получение обратной информации.
4. Малая утомляемость нервного волокна - впервые показана Введенским, в его опытах нерв сохранял способность к проведеню возбуждения 6-8 часов беспрерывно, это обусловлено незначительным расходом запасов трансмембранных ионных градиентов, и следовательно нужны небольшие количества АТФ для их восстановления.
5. Возможность функционального блока проведения возбуждения при морфологической целостности волокон - Введенский, при действии различных факторов на нерв, вызывающих длительную деполяризацию, возникает полный блок проведения нервных импульсов(состояние парабиоза) оно связано с инактивацией более 50% натриевых каналов, парабиоз возможен при действии анестетиков, гипоксии, воспалении или охлаждении, после них, если они не вызвали грубых изменений структурных, проведение возбуждения восстанавливается.
6. Высокая лабильность - нервное волокно может проводить 200-400 имп/сек.
6 вопрос . Нервно-мышечный синапс. Возбуждение от нервного волокна к другой клетке
передается с помощью синапса. Нервно-мышечный синапс состоит из пресинаптического окончания, синоптической щели и постсинаптической мембраны. Мотонейроны спинного мозга имеют длинные аксоны, которые в месте контакта с мышцей ветвятся, образуя нервно-мышечные синапсы. Область мышечного волокна, с которой контактирует нервное окончание, носит название концевой пластинки.
Пресинаптическое окончание - образовано расширениями по ходу разветвления аксона, иннервирующего мышечное волокно, главный фрагмент - синаптические пузырьки(везикулы), образующиеся в комплексе Гольджи, и доставляющиеся в пресинаптическое окончание, где заполняются медиатором и АТФ, в каждой везикуле от 1 до 10 тысяч молекул химического вещества.
Важная структура также митохондрия, осуществляющая энергетическое обеспечение процесса синаптической передачи., цистерны гладкой эндоплазматической сети, содержащие депонированный кальций, микротрубочки и микрофиламенты,участвующие во внутриклеточном движении везикул.
Синаптическая щель - содержит межклеточную жидкость и мукуполисахаридное вещество, образующее мостики, обеспечивающие связь пресинаптической и постсинаптической мембран, и может содержать ферменты. Постсинаптическая мембрана - содержит белковые рецепторы, имеющие ионные каналы, и способные связать молекулы медиатора, постсинаптическую мембрану также называют коневой пластинкой. Механизм проведения возбуждения включает 4 этапа.
1 этап - выброс медиатора в синаптическую щель, запускается посредством ПД пресинаптического окончания, деполяризация мембраны пресинаптического окончания ведет к открытию Кальциевых каналов, и он входит согласно электрохимическому градиенту, с помощью кальция происходит выброс ацетилхолина в синаптическую щель. 2 этап - диффузия ацетилхолина к постсинаптической мембране, где находятся N-холинорецепторы, этот процесс занимает 1 миллисекунду.
3 этап - возникновение возбуждения в мышечном волокне. В результате взаимодействия АХ с N-холинорецепторами, открываются ионные каналы и натрий входит в клетку, развивается деполяризация, из-за преобладания натрия, эта деполяризация называется потенциал концевой пластинки, чье электрическое поле достаточно для генерации ПД на мембране близ синапса.
4 этап - удаление Ах из синаптической щели - путем разрушения под действием ацецитхолинэстеразы (расположена в базальной мембране синаптической щели) около 60% захватывается обратно, это делает синтез медиатора более экономичным, часть АХ рассеивается.
Сравнительная характеристика проведения возбуждения по синапсу и нервному волокну:
1. Задержка в передаче сигнала к другой клетке (в нервно-мышечном синапсе 0,5-1 мс) это время расходуется на высвобождение медиатора, диффузию его в постсинаптической мембране, возникновение постсинаптических потенциалов, способных вызвать ПД.
2. Низкая лабильность синапса - в синапсе 30-50 Гц, в нервном волокне 400 Гц, она объясняется тем, что необходимо время на высвобождение медиатора
3. Одностороннее проведение- возбуждение передается только от нервного волокна к другой нервной клетке или к эффекторной клетке, так как пресинаптическое окончание чувствительно только к нервному импульсу, а постсинаптическая мембрана к медиатору
4. Неизолированное проведение - возбуждение рядом расположенных постсинаптических мембран суммируется.
6. Проводимость стимулируется и угнетается различными веществами - например кураре и курареподобные вещества связываются с n-холинорецепторами и блокируют действие ах на них.
7. Утомляемость синапсов - ухудшение проводимости вплоть до полной блокады при длительном функционировании синапса, причина истощение медиатора.
7 вопрос Скелетная мышца - произвольная мускулатура, т.к. их движениями можно управлять по собственному желанию. Структурной и сократительной единицей мышцы является мышечное волокно, представляющее собой сильно вытянутое многоядерное волокно, длина его определяется размерном мышцы, имею мембранную оболочку - сарколемму. Внутри мышечного волокна от одного конца до другого тянется масса нитей - миофибрилл, они дают способность к сокращению.
Они группируются в пучки по 4-20 штук, в одной миофибрилле насчитывается 2000-2500 тысячи протофибрил - параллельно ледащих нитей двух типов - толстых и тонких, толстые - из миозина, тонкие - из актина.
В продольных бороздках нитей миозина расположены регуляторные единицы, состояние из белком тропомиозина и тропонина, эти белки при невозбужденной мышце блокируют контакт актина и миозина, репресорная роль тропонина снимается кальцием, который поступает при возбуждении.
Физиологические свойства мышц: возбудимость(способность возбуждаться под действием раздражителей), проводимость (способность проводить ПД), сократимость (изменение длины или напряжение при возбуждении), растяжимость (спос. Изм. Длину), эластичность (восстановленеи первоначальнйо длины после прекращения ПД). Функции: с помозью движений осущ. Трудовая деятельность, с сокращением мышц связаны не только поддержание позы, но и теплопродукция, кровоток.
Классификация двигательных единиц: Представляет собой периферический мотонейрон, его отростки и группу иннервируемых им мышечных волокон. При этом аксон мотонейрона, идущий к мышце, обеспечивающей тонкие движения, иннервируют по 5-12 нервных волокон, тогда как крупные мышцы, осуществляющие массивные движения, получают импульсацию по аксонам, каждый из которых иннервирует 100-500 экстрафузальных мышечных волокон.
Их разделяют на медленные (низкопороговые, малые мотонейроны, малоутомляемые) и быстрые(высокопороговые, утомляемые, т.к. неспособны к длительному поддержанию высокочастотного разряда). Мышечные волокна быстрых и медленных также различаются: быстрые волокна белые, более толстые, обладают большей силой, в них меньше митохондрий, жиров и миоглобина, не обладают большой выносливостью.
Красные волокна медленные окружены богато капиллярами, получают много крови, тем самым и кислорода. Миоглобин обуславливает цвет волокон, волокна содержат большое количество митохондрий и жиров, это определяет их высокоустойчивость. структурная единица скелетной мышцы - это миофибрилла, а функциональная - мышечное волокно
8 вопрос было обнаружено, что миозиновые нити имею выступы, названные мостиками, они отходят от нитей биполярно, состоят из головки и шейки в спокойном состоянии не могут соединиться с актиновым концом из-за особого расположения тропомиозина, закрывающего активные центры актина. Тропонин подавляет миозин АТФазную активность, что делает невозможным расщепление АТФ, в результате чего мышечные волокна пребывают в расслабленном состоянии.
Сокращение мышечных волокон связано с процессами генерации и распространения ПД по поверхностной мембране, а также по мембранам выстилающим трубочки Т, проникая внутрь ПД за счет своего электрического поля приводит к деполяризации мембран продольных трубочек и цистерн саркоплазматического ретикулума, снижение их мембранного потенциала вызывает выход кальция из боковых цистерн в межфибрилярное пространство, и кальций запускает процесс взаимодействия актина с миозином и сокращение мышцы.
В присутствии ионов кальция и АТФ тропонин изменяет свою конфигурацию и отодвигает нить тропомиозина, обеспечивая возможность соединения актина и головки миозина. Головка миозина приобретает АТФазную активность, в ней происходит гидролиз АТФ, сопровождаемый пространственной сменой ориентации.
Это носит название грибкового движения, обеспечивающее втягивание тонких актиновых миофиламентов в промежутки между толстым миозином, затем отрыв мостика и все заново.
9 вопрос Типы мышечных сокращений. в зависимости от условий, в которых происходит сокращение, различают два типа - изотоническое и изометрическое. Сокращение мышцы, при котором ее волокна укорачиваются, но напряжение остается постоянным, называется изотоническим. При изометрическом сокращении мышцы укоротиться не может, если оба ее конца укреплены неподвижно, в этом случае напряжение возрастает, а длина мышцы остается неизменной.
В естественных условиях сокращения мышц носят смешанный характер. Выделяют одиночное и тетаническое сокращение мышц. Одиночное сокращение изолированной мышцы: оно возникает в эксперименте при раздражении ее одиночным электрическим стимулом. Волна возникает в месте приложения электродов. В изотоническом
режиме одиночное сокращение икроножной мышцы лягушки начинается через короткий скрытый (латентный) период - до 0,01 с, далее следуют фаза подъема (фаза укорочения) - 0,05 с и фаза спада (фаза расслабления) - 0,05-0,06 с. Обычно мышца укорачивается на 5-10 % от исходной длины. Как известно, продолжительность волны возбужения (ПД) мышечных волокон варьирует,
составляя величину порядка 1 - 10 мс (с учетом замедления фазы реполяризации в ее конце). Мышечное волокно реагирует на раздражение по правилу "все или ничего", т.е. отвечает на все надпороговые раздражения стандартным ПД и стандартным одиночным сокращением. Это связано с различной возбудимостью мышечных волокон и разным расстоянием их от раздражающих электродов, что ведет к неодинаковому количеству активированных мышечных волокон.
При пороговой силе стимула сокращение мышцы едва заметно, потому что в реакцию вовлекается лишь небольшое количество волокон. При увеличении силы раздражения число возбужденных волокон растет, пока все волокна не окажутся сокращенными, и тогда достигается максимальное сокращение мышцы. Дальнейшее усиление стимулов прироста амплитуды со
кращения не вызывает. Новое сокращение возникает после полного расслабления мышечных волокон. Коэффициентом полезного действия (КПД) называется отношение энергии, затраченной на работу мышц, ко всей энергии, произведенной в мышцах во время работы. АТФ в скелетной
мышце используется для трех процессов: 1) работы натрий-калиевого насоса, обеспечивающего поддержание постоянства градиента концентрации этих ионов по обе стороны мембраны; 2)процесса скольжения акти-новых и миозиновых нитей, приводящих к укорочению миофибрилл (комплекс актин-миозин становится стабильным только при трупном окоченении, когда концентрация АТФ в мышце падает ниже некоторой критической величины); 3) работы кальциевого насоса, активируемого при расслаблении волокна.
10 вопрос Тетаническое сокращение - это длительное слитное сокращение скелетных мышц. В его основе лежит явление суммации одиночных мышечных сокращений. При нанесении на мышечное волокно или целую мышцу двух быстро следующих друг за другом раздражений возникающее сокращение будет иметь большую амплитуду. Сократительные эффекты, вызванные первым и вторым раздражениями, как бы складываются, происходит суммация.
При этом в сокращение могут вовлекаться ранее не сокращавшиеся мышечные волокна, если первый стимул вызвал у них подпороговую деполяризацию, а второй увеличивает ее до критической величины. При получении суммации в одиночном волокне важно, чтобы второе раздражение наносилось после исчезновения ПД, т.е. после рефрактерного периода. При сравнительно низких частотах наступает зубчатый тетанус, при большой частоте - гладкий тетанус (рис. 6.4).
Их амплитуда больше величины максимального одиночного сокращения. Напряжение, развиваемое мышечными волокнами при гладком тетанусе, обычно в 2-4 раза больше, чем при одиночном сокращении. Режим тетанического сокращения мышечных волокон в отличие от режима одиночных сокращений быстрее вызывает их утомление и поэтому не может поддерживаться длительное время.
Из-за укорочения или полного отсутствия фазы расслабления мышечные волокна не успевают восстановить энергетические ресурсы, израсходованные в фазе укорочения. Сокращение мышечных волокон при тетаническом режиме с энергетической точки зрения происходит "в долг". амплитуда гладкого тетануса колеблется в широких пределах в зависимости от частоты стимуляции нерва.
При некоторой оптимальной (достаточно высокой) частоте стимуляции амплитуда гладкого тетануса становится наибольшей. Такой гладкий тетанус получил название оптимума. При дальнейшем повышении частоты стимуляции нерва развивается блок проведения возбуждения в нервно-мышечных синапсах, приводящий к расслаблению мышцы в ходе стимуляции нерва - пессимум Введенского.
Частота стимуляции нерва, при которой наблюдается пессимум, получила название пессимальной. В естественных условиях к мышечным волокнам поступают не одиночные, а ряд нервных импульсов, на которые мышца отвечает длительным, тетаническим сокращением, или тетанусом. К тетаническому сокращению способны только скелетные мышцы. При длительном ритмическом раздражении в мышце развивается утомление.
Признаками его являются снижение амплитуды сокращений, увеличение их латентных периодов, удлинение фазы расслабления и, наконец, отсутствие сокращений при продолжающемся раздражении, это является следствием того, что калинатриевый насос не успевает возвращать калий и натрий на свои места, натрий накапливается внутри клетки, калий вне клетки, это ведет к деполяризации миоцитов и снижению ПД
11 вопрос Гладкая мышца. Гладкие мышцы построены из веретенообразных одноядерных мышечных клеток. Волокна очень тесно примыкают
друг к другу и связаны между собой низкоом-ными электрическими контактами - нексу
сами. Несмотря на наличие межклеточных щелей шириной 60-150 нм, гладкая мышца функционирует как синцитий - функциональное образование, в котором возбуждение
(медленные волны деполяризации и ПД) способно беспрепятственно передаваться с
одной клетки на другую по крайней мере в пределах одного мышечного пучка, являющегося обычно функциональной единицей гладкой мышцы). Этим свойством гладкая мышца отличается от скелетной и сходна с сердечной, которая тоже представляет собой функциональный синцитий. Однако в сердце достаточно возбудить один миоцит - и возбуждение охватит весь миокард. В гладких мышцах ПД, возникший в одной клетке, распространяется лишь на определенное рассто
яние. ПП в волокнах, не обладающих автоматией, 60-70 мв, она несколько ниже в спонтанно активных клетках - 30-70 мв. ПД - В гладких мышцах внутренних органов регистрируются ПД двух
основных типов: пикоподобные ПД и ПД с выраженным плато. Длительность пикопо-добных ПД составляет 5-80 мс; ПД с плато, характерными для гладких мышц матки, уретры и некоторых сосудов, длятся от 30 до 500 мс. Процесс сокращения гладкомышечных волокон совершается по тому же механизму скольжения нитей актина и миозина относительно друг друга, что и в скелетных мышцах. Того количества кальция, которое входит в клетку при возбуждении, вполне
достаточно для полноценного фазного сокращения. Инициация сокращений гладких мышц с
помощью ионов Са2+ также имеет несколько другой механизм, чем в поперечнополосатых
волокнах. Ионы Са2+ воздействуют на белок кальмодулин, который активирует киназы легких цепей миозина. Это обеспечивает перенос фосфатной группы на миозин и сразу вызывает срабатывание, т.е. сокращение, поперечных мостиков. О существовании тропонин-тропомиозиновой системы сведений не имеется.
12 вопрос Рецептор - структурный элемент клеточной мембраны, воспринимающий действие определнного вида раздражителя и запускающие формирование ответной реакции клетки. По назначению бывают сенсорные, эффекторные и нейронные. сенсорные рецепторы -специфические клетки, настроенные на восприятие различных раздражителей внешней и
внутренней среды организма и обладающие высокой чувствительностью к адекватному
раздражителю. К неадекватным раздражителям - они малочувствительны. Неадекватные раздражители могут возбудить рецепторы: например, механическое давление на глаз вызывает ощущение света, однако энергия неадекватного раздражителя должна быть в миллионы и милли
арды раз больше адекватного. Сенсорные рецепторы являются первым звеном в рефлекторном пути и периферической частью более сложной структуры - анализаторов. эффекторные рецепторы - представляют собой белковые структуры клеточных мембран, а также цитоплазмы и ядра, способные связывать активные химические соединения (гормоны, медиаторы, лекарства и др.) и запускать ответные реакции клетки на эти соединения.
Нейронные - постсинаптические рецепторы нейронов, воспринимающие действие медиатора и запускающие процесс обработки информации и ее хранение в нейронах, а также посылку сигналов к другим нейронам ЦНС и приказов (ПД) к рабочим клеткам. Классификация рецепторов в зависимости от вида воспринимающей информации: Механорецепторы возбуждаются при механической их деформации. Они расположены в коже, сосудах, внутренних органах,
опорно-двигательном аппарате, слуховой и вестибулярной системах. Хеморецепторы воспринимают химические изменения внешней и внутренней среды. К ним относятся вкусовые
и обонятельные рецепторы, а также рецепторы, реагирующие на изменение состава крови, лимфы, межклеточной и цереброспинальной жидкости (изменение напряжения 02 и С02, осмолярности, рН, уровня глюкозы и других веществ). Такие рецепторы есть в
слизистой оболочке языка и носа, каротид-ном и аортальном тельцах, гипоталамусе и
продолговатом мозге. Терморецепторы - воспринимают изменения температуры. Они подразделяются на тепловые и холодовые рецепторы и находятся в коже, сосудах, внутренних органах, гипоталамусе, среднем, продолговатом и спинном мозге. Фоторецепторы в сетчатке глаза воспринимают световую (электромагнитную) энергию. Ноцицепторы - их возбуждение сопровождается болевыми ощущениями (болевые рецепторы).
Раздражителями этих рецепторов являются механические, термические и химические (гистамин, брадикинин, К+, Н+ и др.) факторы. Болевые стимулы воспринимаются свободными нервными окончаниями, которые имеются в коже, мышцах, внутренних органах, дентине, сосудах. Классификация по расположению: экстеро- и интерорецепторы.
К экстерорецепторам относятся рецепторы кожи, видимых слизистых оболочек и органов чувств: зрительные, слуховые, вкусовые, обонятельные, тактильные, кожные болевые и температурные. К интерорецепторам принадлежат рецепторы внутренних органов
(висцерорецепторы), сосудов и ЦНС. Разновидностью интерорецепторов являются рецепторы опорно-двигательного аппарата (проприорецепторы) и вестибулярные рецепторы. В зависимости от степени специфичности рецепторов, т.е. их способности отвечать на один или более видов раздражителей, выделяют мономодальные и полимодальные рецепторы.
Мономодальность особенно характерна для экстерорецепторов (зрительных, слуховых, вкусовых и др.) Полимодальные рецепторы приспособлены к восприятию нескольких адекватных раздражителей, например механического и температурного или механического, химического и болевого. К полимодальным рецепторам относятся, в частности, ирритантные рецепторы легких, восприни
мающие как механические (частицы пыли), так и химические (пахучие вещества) раздражители во вдыхаемом воздухе. По структурно-функциональной организации различают первичные и вторичные рецепторы. Первичные представляют собой чувствительные окончания дендрита афферентного нейрона, раздражитель действует непосредственно на окончания сенсорного нейрона. Во вторичных рецепторах имеется специальная клетка, синаптически связанная с
окончанием дендрита сенсорного нейрона, для вторичных рецепторов характерно, что рецепторныи потенциал и потенциал действия возникают в разных клетках, при этом рецепторныи потенциал формируется в специализированной рецепторной клетке, а потенциал
действия - в окончании сенсорного нейрона. Ко вторичным рецепторам относятся слуховые, вестибулярные, вкусовые рецепторы, фоторецепторы сетчатки. По скорости адаптации рецепторы делят на три группы: быстро адаптирующиеся (фазные), медленно адаптирующиеся (тонические)
и смешанные (фазно-тонические), адаптирующиеся со средней скоростью. Свойства рецепторов:
Высокая возбудимость рецепторов. Основное физиологическое значение рецепторов состоит в обеспечении поступления в ЦНС информации о состоянии внешней и внутренней среды, что создает условия для осуществления нервной системой взаимодействия организма и среды. Этому способствует высокая возбудимость рецепторов. Адаптация рецепторов - уменьшение
их возбудимости при длительном действии раздражителя. Процессы адаптации, формирующиеся на разных этапах преобразующей деятельности рецепторов, приводят к снижению амплитуды РП
и как следствие частоты импульсации афферентного нейрона. Спонтанная активность рецепторов. Многие виды рецепторов (фото-, фоно-, вес-тибуло-, термо-, хеморецепторы, проприоре-цепторы) способны генерировать в нейроне импульсацию (потенциалы действия) без
действия на них раздражителя. Эта способность связана со спонтанным колебанием мембранного потенциала в рецепторе, которыи при этом периодически достигает критического уровня деполяризации, что приводит к генерации потенциалов действия в афферентном нейроне.
Возбудимость рецепторов находится под нейрогуморальным контролем целостного организма.
Нервная система может регулировать активность рецепторов через изменение концентрации гормонов, которые, действуя на белки рецепторной мембраны, изменяют состояние ионных каналов и скорость ферментных реакций (например, повышение чувствительности зрительных и слуховых рецепторов под влиянием адреналина, тироксина). Нервная система изменяет чувстви
тельность рецепторов и через регуляцию кровотока в рецепторной зоне, уровень которого
влияет на состав и температуру внеклеточной жидкости около рецептора (например, эндолимфы в органах слуха и равновесия). Вместе с тем нервная система может оказать дорецепторное влияние, регулируя силу действующего на рецептор раздражителя (изменение потока света с помощью зрачкового рефлекса, изменение интенсивности звука с помощью мышц, влияющих на подвижность слуховых косточек и барабанной перепонки).
Педиатрические вопросы
1. Возрастная физиология - это наука, изучающая особенности процесса жизнедеятельности организма на разных этапах онтогенеза. Возрастная физиология тесно связана со многими разделами физиологической науки и, широко использует данные из многих других биологических наук.
Так, для понимания закономерностей формирования функций в процессе индивидуального развития человека необходимы данные таких физиологических наук, как физиология клетки, сравнительная и эволюционная физиология, физиология отдельных органов и систем: сердца, печени, почек, крови, дыхания, нервной системы и т. д. Возрастные периоды: Сразу после рождения наступает период, называемый периодом новорожденности (1-10 дней).Основанием для этого выделения служит тот факт, что в это время имеет место вскармливание ребенка молозивом в течение 8-10 дней. грудной период продолжается до года.
Начало этого периода связано с переходом к питанию "зрелым" молоком. Во время грудного периода наблюдается наибольшая интенсивность роста, по сравнению со всеми остальными периодами жизни. Период раннего детства длится от 1 года до 4 лет. В конце второго года жизни заканчивается прорезывание зубов. После 2 лет абсолютные и относительные величины годичных приростов размеров тела быстро уменьшаются.
С 4 лет начинается период первого детства, который заканчивается в 7 лет. Начиная с 6 лет появляются первые постоянные зубы: первый моляр и медиальный резец на нижней челюсти. Возраст от 1 года до 7 лет называют также периодом нейтрального детства, поскольку мальчики и девочки почти не отличаются друг от друга размерами и формой тела. Период второго детства длится у мальчиков с 8 до 12 лет, у девочек - с 8 до 11 лет.
В этот период выявляются половые различия в размерах и форме тела, а также начинается усиленный рост тела в длину. Темпы роста у девочек выше, чем у мальчиков, так как половое созревание у девочек начинается в среднем на два года раньше. Следующий период - подростковый - называется также периодом полового созревания, или пубертатным периодом. Он продолжается у мальчиков с 13 до 16 лет, у девочек - с 12 до 15 лет.
В это время наблюдается дальнейшее увеличение скоростей роста - пубертатный скачок, который касается всех размеров тела. Юношеский возраст продолжается у юношей от 18 до 21 года, а у девушек - от 17 до 20 лет. В этот период в основном заканчиваются процесс роста и формирование организма и все основные размерные признаки тела достигают дефинитивной (окончательной) величины.
Взрелом возрасте , который продолжается у мужчин от 22 до 60 лет, а у женщин от 21 до 55 лет,форма и строение тела изменяются мало. В пожилом (мужчины - 61-74 года, женщины - 56-74 года)и старческом (75-90 лет)возрасте происходят постепенные инволютивные изменения организма. Выделяют еще один возрастной период - долгожительство (свыше 90 лет).
2,7. Возбудимость мышц плода крайне низка, что обнаруживается при прямом раздражении. У детей также отмечается пониженная возбудимость нервно-мышечной системы - большая пороговая сила и длительная хронаксия. Хронаксия новорожденных в 1,5-10 раз превышает хронаксию мышц взрослых.
Развитие возбудимости в онтогенезе непосредственно зависит от становления физико-химических свойств мембран, величины и избирательности их проницаемости для ионов К+, Na+, СГ, т.е. формирования специализированных ионных каналов и ионных насосов. Первым условием возбудимости клеток является наличие потенциала покоя, который составляет для мионов новорожденных 20-40 мВ (у взрослых - 70-80 мВ).
У новорожденных отмечается низкий уровень содержания ионов К+ в клетке и большее, чем у взрослых, содержание ионов Na+, поэтому потенциал покоя и потенциал действия значительно меньше, чем у взрослых, более растянут во времени, что определяет большую длительность абсолютной и относительной рефрактерных фаз.
В процессе роста (в результате уменьшения проницаемости и улучшения работы ионных помп) потенциал покоя и соответственно потенциал действия возрастают. Низкая лабильность объясняется длительностью абсолютной и относительной рефрактерных фаз, длительностью одиночного мышечного сокращения.
Функции мышц новорожденных детей: основной функцией которой является теплопродукция
3,4. Главный критерий степени зрелости мякотных нервных волокон - их миелинизация, особенно интенсивная к концу антенатального периода. При этом увеличивается расстояние между перехватами Ранвье и изменяется распределение ионных каналов. У ребенка первых лет жизни при неполной миелинизации нервных волокон распределение Na- и К-каналов в мембране равномерное.
После завершения миелинизации каналы концентрируются в области перехватов Ранвье, что обусловлено перераспределением в мембране белковых молекул, являющихся основой каналов. В безмякотных волокнах распределение ионных каналов остается равномерным по всей длине волокна. Передние спинномозговые корешки у детей достигают состояния, свойственного взрослым, в период от 2-го до 5-го года жизни, а задние - от 5-го до 9-го года.
Миелинизация нервных волокон близка к завершению к 9 годам жизни ребенка.С возрастом в результате созревания нервных волокон их возбудимость, скорость проведения возбуждения и лабильность увеличиваются.
Миелинизация нервных волокон обеспечивает увеличение скорости проведения возбуждения вследствие того, что непрерывное проведение возбуждения сменяется сальтаторным и увеличивается расстояние между перехватами Ранвье (ПД электротонически "перепрыгивает" на большее расстояние).
Увеличение толщины безмякотного нервного волокна и еще не покрытого миелином мякотного нервного волокна ведет к ускорению проведения возбуждения вследствие уменьшения продольного сопротивления.
5. Структурно-функциональное созревание нервно-мышечных синапсов охватывает пе
риод антенатального и раннего постнаталь-ного периодов развития. Оно имеет свои осо
бенности для пре- и постсинаптических мембран. Созревание пресинаптической мембраны проявляется в увеличении терминального разветвления аксона, усложнении его формы, увеличении площади всего окончания. Степень созревания нервных окончаний значительно увеличиваются к 7-8 годам, при этом проявляются более быстрые и разнообразные движения.
В процессе развития усиливается синтез ацетилхолина в мотонейронах, увеличиваются количество активных зон в пресинаптическом окончании и количество квантов медиатора, выделяющегося в синаптическую щель. Когда окончание аксона достигает миотрубки, в соответствующем ее участке появляются скопления митохондрий, рибосом, мик
ротрубок. На поверхности миотрубки образуются выемки, в которых помещается окончание аксона. Образуется примитивное нервно-мышечное соединение. Образуются складки на постсинаптической мембране, в результате чего растет амплитуда ПКП и повышается надежность передачи возбуждения через синапс. Внесинаптическая поверхность мышечного волокна постепенно теряет чувствительность к ацетилхолину.
Вследствие незрелости нервно-мышечного синапса у плода и новорожденного синаптическая передача возбуждения происходит медленно. Без трансформации ритма через такой синапс передается не более 20 импульсов в 1 с, а к 7-8 годам жизни - около 100 импульсов в 1 с, т.е. как у взрослого.
6,8. Возбудимость мышц плода крайне низка, что обнаруживается при прямом раздражении. У детей также отмечается пониженная возбудимость нервно-мышечной системы - большая пороговая сила и длительная хронаксия. Хронаксия новорожденных в 1,5-10 раз превышает хронаксию мышц взрослых.
Развитие возбудимости в онтогенезе непосредственно зависит от становления физико-химических свойств мембран, величины и избирательности их проницаемости для ионов К+, Na+, СГ, т.е. формирования специализированных ионных каналов и ионных насосов. Первым условием возбудимости клеток является наличие потенциала покоя, который составляет для мионов новорожденных 20-40 мВ (у взрослых - 70-80 мВ).
У новорожденных отмечается низкий уровень содержания ионов К+ в клетке и большее, чем у взрослых, содержание ионов Na+, поэтому потенциал покоя и потенциал действия значительно меньше, чем у взрослых, более растянут во времени, что определяет большую длительность абсолютной и относительной рефрактерных фаз.
В процессе роста (в результате уменьшения проницаемости и улучшения работы ионных помп) потенциал покоя и соответственно потенциал действия возрастают. Низкая лабильность объясняется длительностью абсолютной и относительной рефрактерных фаз, длительностью одиночного мышечного сокращения. Лабильность. Скелетные мышцы во внутриутробном периоде характеризуются чрезвычайно низкой лабильностью: они способны воспроизводить лишь 3-4 сокращения в секунду.
В раннем детском возрасте скелетные мышцы также характери
зуются признаками низкой лабильности. Низкая лабильность объясняется длительностью абсолютной и относительной рефрактерных фаз, длительностью одиночного мышечного сокращения. С возрастом лабильность мышц увеличивается, что ведет, естественно, и к увеличению быстроты движений. Сократимость.
Особенностью мышц плода и новорожденных является замедленность одиночных сокращений - как фазы сокращения, так и фазы расслабления, поэтому кривая одиночного мышечного сокращения у новорожденных резко растянута во времени по сравнению с кривой взрослого. Тетанус новорожденного имеет пологое начало и постепенное расслабление, напоминая тетанус утомленной мышцы. Считают, что это связано с более быстрым накоплением метаболитов в мышцах новорожден
ного. Кроме того, у новорожденного, как правило, отсутствуют различия скорости сокращения будущих быстрых и медленных мышц, хотя сами мышцы уже различаются по цвету (белые и красные) и по гистохимическим признакам. Мышцы независимо от частоты и интенсивности раздражителя отвечают тоническим типом сокращения, которое длится столько, сколько продолжается раздражение, без признаков перехода в состояние пессимума.
Отсутствие выраженного пессимума связывают с недостаточным структурным оформлении мионевральных синапсов. Эластичность мышц детей раннего возраста значительно больше, чем у взрослых, с возрастом она уменьшается. Упругость и прочность мышц, напротив, с возрастом увеличиваются.
9. Наиболее общим проявлением функции движения является работоспособность мышц, которая лежит в основе возрастной эволюции различных двигательных качеств, опреде-ляющих взаимодействие организма со средой. Напомню, что под физической работо-способностью понимается потенциальная способность человека показать максимум физического усилия в статической, динамической или смешанной работе.
Изучение возрастных особенностей величины этого показателя у детей младшего школьного возраста существенно затруднен, так как основной метод регистрации уровня физической работоспособности требует определенного уровня физического развития. Поэтому достоверные данные об изменении мышечной работоспособности относятся почти исключительно к детям старше 6-7 лет.
Систематические исследования изменений мышечной работоспособности у детей в возрасте от 7 до 18 лет показывает, что с возрастом работа, выполняемая ребенком на эргографе в течении 1 мин увеличивается, причем прирост количества работы изменяется неравномерно в разные возрастные периоды. Существуют и определенные особенности, характеризующие процесс роста и развития ребенка.
Так, например, амплитуде эргограмм свойственно снижение (отчетливое) в период от 7-9 до 10-12 лет, которое сменяется затем постепенным увеличением. Обнаруживается четко выраженное снижение суммарной биоэлектрической активности мышц, то есть с возрастом улучшается использование мышцами нервного напряжения.
Изменяется также и характер биоэлектрической активности.Если у детей 7-9 лет пачки импульсов выражены нечетко, часто отмечается непре-кращающаяся электрическая активность, то по мере роста и развития ребенка участки повышенной активности все более разделяются интервалами, на протяжении которых биопотенциалы не регистрируются. Это указывает на то, что с возрастом повышается уровень функционирования двигательного аппарата.
По мере роста и развития ребенка происходит концентрация нервных процессов и повышение лабильности мышц.
Одной из важных характеристик мышечной работоспособности является ее восстановление после физической нагрузки.
Дыхательная система.
1. Дыхание - совокупность процессов, обеспечивающих поступление в организм кислорода, использование его для окисления органических веществ с освобождением энергии и выделением углекислого газа в окружающую среду. В среднем в состоянии покоя человек потребляет в течение 1 мин 250 мл 02 и выделяет 230 мл С02. Различают несколько этапов дыхания: 1) газообмен между альвеолами и окружающей средой - вентиляция легких;
2)газообмен между кровью организма и газовой смесью, находящейся в легких; 3)транспорт газов кровью - 02 от легких к тканям, С02 от тканей организма к легким; 4)газообмен между кровью и тканями организма: 02 поступает к тканям, а С02 из тканей в кровь; 5) потребление 02 тканями и выделение С02 - тканевое (внутреннее) дыхание.
Совокупность первого и второго этапов дыхания - это внешнее дыхание, обеспечивающее газообмен между окружающей средой и кровью. Оно осуществляется с помощью внешнего звена системы дыхания, включающего легкие с воздухоносными путями и грудную клетку с мышцами, приводящими ее в движение.
Прочие этапы дыхания осуществляются посредством внутреннего звена системы дыхания, включающего кровь, сердечно-сосудистую систему, органеллы клеток, и в конечном итоге обеспечивают тканевое (внутреннее) дыхание. Легкие в процессе дыхания выполняют газообменную функцию - главная их роль в организме. Функциональной единицей легкого является ацинус. Кроме газообменной функции, легкие выполняют и ряд других - негазообменных
функций: Выделительная - удаление воды и некоторых летучих веществ: ацетона, этилмер-каптана, этанола, эфира, закиси азота. Газообменная функция является также и выделительной (удаление С02 из организма). Выработка биологически активных веществ гепарина, тромбоксана В2, проста-гландинов, тромбопластина, факторов свертывания крови VII и VIII, гистамина, серотонина, метилтрансферазы, моноаминоксидазы, гликозилтрансферазы. Легкие являются основным источником тромбопластина в организме: когда его мало в крови, выработка возрастает, когда много - выработка тром
бопластина уменьшается. Инактивация биологически активных веществ - эндотелий капилляров легких инак-тивирует за счет поглощения или ферментативного расщепления многие биологически активные вещества, циркулирующие в крови.
Защитная функция - легкие являются барьером между внутренней и внешней средой организма, в них образуются антитела, осуществляется фагоцитоз, вырабатываются лизоцим, интерферон, лактоферрин, иммуноглобулины; в капиллярах задерживаются и разрушаются микробы, агрегаты жировых клеток, тромбоэмболы. Функцию фагоцитоза выполняют так называемые альвеолярные фагоциты.
Это крупные клетки округлой формы, они находятся в свободном виде в альвеолах и являются макрофагами. Эти клетки фагоцитируют попавшие в легкие мелкие пылевые частицы (менее 2 мкм), микроорганизмы и вирусы, компоненты сур-фактанта, продукты распада клеток альвеолярного эпителия. Макрофаги с воздухом достигают бронхиол, а далее с помощью мерцательного эпителия с мокротой выделяются из организма или попадают в желудочно-кишечный тракт.
Терморегуляция - в легких вырабатывается большое количество тепла. Легкие являются резервуаром воздуха для голосообразования.
Воздухоносный путь - это пространство, которое обеспечивает доставку атмосферного воздуха в газообменную область. Негазообменные функции: Очищение вдыхаемого воздуха от крупных пылевых частиц происходит в волосяном фильтре в преддверии носа. В полости носа удаляется до 85 % мелких частиц (размер до 4,5 мкм).
Более мелкие частицы (до 1 мкм), прошедшие дальше, оседают на слизистой оболочке носа, чему способствуют турбулентный характер движения воздуха в носовых ходах и слизистый секрет оболочки носа. Очищению воздуха от попавших частиц способствуют кашель и чиханье - защитные рефлексы. Кашлевой рефлекс начинается с глубокого вдоха.
Он возникает в результате раздражения ирритантных рецепторов слизистой оболочки
гортани, глотки, трахеи и бронхов, импульсы от которых поступают по верхнегортанному,
тройничному и блуждающему нервам в ядро солитарного тракта, а оттуда - к экспиратор
ным нейронам, обеспечивающим форсированный выдох через рот и выброс воздуха с
попавшими в воздухоносные пути частицами. Главную роль в осуществлении кашлевого рефлекса играют мышцы живота. Чиханье возникает в результате раздражения ре
цепторов тройничного нерва оболочки носа. Механизм чиханья подобен механизму
кашля, но воздух изгоняется в основном через нос. При этом возникает слезоотделение, что способствует очищению воздуха: попавшие в нос частицы смываются слезой, оттекающей через слезноносовой канал в полость носа. Увлажнение вдыхаемого воздуха достигает 100 %, начинается еще в верхних дыхательных путях, в первую очередь в полости носа насыщением воздуха влагой слизистой оболочки.
Слизь образуется в результате фильтрации жидкости из кровеносных капилляров, выделений из желез слизистой оболочки и слезных желез. За сутки из оболочки носа может испаряться в зависимости от температуры и влажности воздуха до 0,5 л воды. Согревание воздуха также начинается в верхних дыхательных путях, в альвеолы воздух поступает при температуре 37 °С.
Особое значение в согревании вдыхаемого воздуха имеет слизистая оболочка носа, богато снабженная кровеносными сосудами. При дыхании носом температура воздуха уже в носоглотке доходит до 35-36 °С. При раздражении чувствительных окончаний тройничного нерва холодным воздухом афферентные импульсы поступают к парасимпатическим центрам продолговатого мозга, в результате
чего расширяются сосуды оболочки носа и воздух лучше нагревается. Этому способствует также сужение носовых ходов в результате увеличения объема кавернозной ткани носовых раковин: воздух проходит более тонкой струей и лучше согревается. Если температура воздуха выше 37 °С, то он охлаждается до этой температуры. Таким образом, нос как начальный отдел воздухоносных путей играет главную роль в очищении, согревании и увлажнении вдыхаемого воздуха.
Воздухоносные пути участвуют в процессах терморегуляции за счет теплоиспарения, конвекции и теплопродукции. Грудная клетка является герметической полостью для легких. Она предохраняет от высыхания и механического повреждения. Грудная клетка своими экскурсиями обеспечивает сужение и расширение легких, а значит, их вентиляцию.
1. Важную роль в процессах внешнего дыхания играет отрицательное давление в плевральной щели. Плевральная щель - узкое пространство между висцеральной и париетальной листками плевры, заполненное серозной жидкостью, обеспечивающей прилегание двух листков плевры друг к другу и скольжение их относительно друг друга. Отрицательное давление - это величина, на которую давление в плевральной щели ниже атмосферного.
В норме это (-4)-(-8) мм рт.ст. Таким образом, реальное давление в плевральной щели составляет величину порядка 752-756 мм рт.ст. и зависит от фазы дыхательного цикла. При максимальном вдохе отрицательное давление возрастает до -20 мм рт.ст., при максимальном выдохе оно приближается к нулю (особенно в нижних отделах), т.е. становится почти равным атмосферному давлению (760 мм рт.ст.).
Рост легких в процессе развития организма отстает от роста грудной клетки. Поскольку на легкое атмосферный воздух действует только с одной стороны - через воздухоносные пути, оно растянуто и прижато к внутренней стороне грудной клетки. Вследствие растянутого состояния легких возникает сила, стремящаяся вызвать спадение легких.
Эта сила называется эластической тягой легких (ЭТЛ) Так как плевральная щель не сообщается с атмосферой, давление в ней ниже атмосферного на величину ЭТЛ: при спокойном вдохе - на 8 мм рт.ст., при спокойном выдохе - на 4 мм рт.ст. О том, что легкие находятся в растянутом состоянии, свидетельствует факт спадения их при пневмотораксе (патологическом состоянии, возникающем при нарушении герметичности плевральной щели, в результате чего атмосферный воздух заполняет плевральную щель, оказываясь между висцеральным и париетальным листками плевры;
ЭТЛ формируют эластиновые и коллаге-новые волокна, гладкие мышцы сосудов легких и, главное, поверхностное натяжение пленки жидкости, покрывающей внутреннюю поверхность альвеол. Силы поверхностного натяжения составляют 2/3 величины ЭТЛ.
Величина поверхностного натяжения альвеолярной пленки существенно изменяется в присутствии сурфактанта - активного вещества легких, образующего слой толщиной 50 нм внутри альвеол, альвеолярных ходов, мешочков и бронхиол. Сурфактант содержит фосфолипиды (в частности, лецитин), триглицериды, холестерин, протеины и углеводы.
Роль: Уменьшает поверхностное натяжение жидкости, покрывающей альвеолы, примерно в 10 раз, тем самым предотвращая ателектаз (слипание) альвеол.
Выполняет защитную роль: а) обладает бактериостатической активностью; б) обеспечивает обратный транспорт пыли и микробов по воздухоносному пути; в) защищает стенки альвеол от повреждающего действия окислителей и перекисей; г) уменьшает проницаемость легочной мембраны, что является профилактикой развития отека легких - это достигается уменьшением выпотевания жидкости из крови в альвеолы.
У курильщиков защитные свойства сурфактанта ослабевают, уменьшается активность альвеолярных макрофагов, снижаются защитные функции легких в целом, чаще встречаются заболевания легких и других органов. Облегчает диффузию кислорода из альвеол в кровь вследствие хорошей растворимости кислорода в нем.
Значение отрицательного давления в плевральной щели для организма заключается в том, что оно обеспечивает сжатие грудной клетки при выдохе и куполообразное положение диафрагмы, так как давление в брюшной полости несколько выше атмосферного за счет тонуса мышц стенки живота, а в грудной полости оно ниже атмосферного.
2. Механизм вдоха и выхода. Поступление воздуха в легкие при вдохе и изгнание его из легких при выдохе осуществляются благодаря ритмичному расширению и сужению грудной клетки. Вдох является первично активным (осуществляется с непосредственной затратой энергии), выдох также может быть первично активным, например, при форсированном дыхании. При спокойном же дыхании выдох является вторично активным, так как осуществляется за счет потенциальной энергии, накопленной при
вдохе. Три одновременно протекающих процессов: 1) расширение грудной клетки, 2)расширение легких, 3) поступление воздуха в альвеолы. Расширение грудной клетки при вдохе обеспечивается сокращением инспираторных мышц и происходит в трех направлениях: вертикальном, фронтальном и сагиттальном. Инспираторными мышцами являются диафрагма, наружные межреберные и межхрящевые.
В вертикальном направлении грудная клетка расширяется в основном за счет сокращения диафрагмы и смещения ее сухожильного центра вниз. Диафрагмальная мышца - главная дыхательная мышца, в норме вентиляция легких на 2/3 осуществляется за счет ее движений. Диафрагма принимает участие в обеспечении кашлевой реакции, рвоты, икоты, в родовых схватках.
При спокойном вдохе купол диафрагмы опускается примерно на 2 см, при глубоком вдохе - до 10 см. Расширение грудной клетки в переднезаднем направлении и в стороны происходит при поднятии ребер вследствие сокращения наружных межреберных и межхрящевых мышц.
Наружные межреберные мышцы при своем сокращении с одинаковой силой тянут верхнее ребро вниз, а нижнее поднимают вверх. энергия при вдохе расходуется только на частичное преодоление ЭТЛ и брюшной стенки, а ребра поднимаются сами. При этом расширяющаяся грудная клетка способствует также преодолению ЭТЛ.
При расширении грудной клетки движение нижних ребер оказывает большее влияние на ее объем и вместе движением диафрагмы вниз, обеспечивает лучшую вентиляцию нижних долей, чем верхушек легких. Вместе с расширением грудной клетки расширяются и легкие.
Главная причина расширения легких при вдохе - атмосферное давление воздуха, действующее на легкое только с одной стороны; вспомогательную роль выполняют силы сцепления (адгезии) висцерального и париетального листков плевры. Увеличение отрицательного давления в плевральной щели является не причиной, а следствием расширения легких.
Имеется еще одна сила, которая способствует расширению легких при вдохе, - это
сила сцепления между висцеральным и париетальным листками плевры. Но она крайне мала по сравнению с атмосферным давлением. Поступление воздуха в легкие при их
расширении является результатом некоторого (на 1,5 мм рт.ст.) падения давления в альвеолах. Этого градиента давления оказывается достаточно, поскольку воздухоносные
пути имеют большой просвет и не оказывают существенного сопротивления движению
воздуха. Кроме того, увеличение ЭТЛ при вдохе обеспечивает дополнительное расши
рение бронхов. Вслед за вдохом плавно начинается выдох. (Экспираторными мышцами являются внутренние межреберные мышцы и мышцы брюшной стенки) Спокойный выдох осуществляется без непосредственной затраты энергии. При вдохе растягиваются легкие, вследствие чего возрастает ЭТЛ. Как только прекращается поступление
нервных импульсов к мышцам вдоха по диафрагмальному и межреберным нервам, прекращается возбуждение мышц, вследствие чего они расслабляются. Грудная клетка суживается под влиянием ЭТЛ и постоянно имеющегося тонуса мышц стенки живота
при этом органы брюшной полости оказывают давление на диафрагму. Вследствие сужения грудной клетки легкие сжимаются. Поднятию купола диафрагмы способствует
также ЭТЛ. Давление воздуха в легких возрастает на 1,5 мм рт.ст. в результате уменьшения их объема, воздух из легких изгоняется в атмосферу. Сужению грудной клетки (опусканию ребер) способствует ее масса. Но главную роль играет ЭТЛ, настолько сильно сжимающая грудную клетку при выдохе, что при вдохе она расправляется сама, без непосредственной затраты энергии за счет сил упругости (потенциальной энергии), накопленной при выдохе.
3. Вентиляция легких - газообмен между атмосферным воздухом и легкими. Гипервентиляция - произвольное усиление дыхания, не связанное с метаболитическими потребностями организма. Гиперпное - непроизвольное усиление дыхания с связи с реальными потребностями организма.
Дыхательный объем (ДО) - это объем воздуха, который человек вдыхает и выдыхает при спокойном дыхании, при этом продолжительность одного цикла дыхания составляет 4-6 с, акт вдоха проходит несколько быстрее. Такое дыхание называется эйпное (хорошее дыхание). Резервный объем вдоха (РО вдоха) - максимальный объем воздуха, который человек может дополнительно вдохнуть после спокойного вдоха.
Резервный объем выдоха (РО выдоха) - максимальный объем воздуха, который можно выдохнуть после спокойного выдоха. Остаточный объем (00) - объем воздуха, остающийся в легких после максимального выдоха. Жизненная емкость легких (ЖЕЛ ) - это наибольший объем воздуха, который можно выдохнуть после максимального вдоха. У молодых людей должную величину ЖЕЛ можно рассчитать по формуле: ЖЕЛ = Рост (м) 2,5 [л]
Функциональная остаточная емкость (ФОЕ) - количество воздуха, остающееся в
легких после спокойного выдоха, равна сумме остаточного объема и резервного объема выдоха. Общая емкость легких (ОЕЛ) - объем воздуха, содержащийся в легких на высоте максимального вдоха, равна сумме ЖЕЛ плюс остаточный объем. Общая емкость легких, как и другие объемы и емкости, весьма вариабельна и зависит от пола, возраста и роста.
Так, у молодых людей в возрасте 20-30 лет она равна в среднем около 6 л, у мужчин в 50-60 лет - в среднем около 5,5 л. Минутный объем воздуха (MOB) - это объем воздуха, проходящего через легкие за 1 мин. Он составляет в покое 6-8 л, частота дыхания - 14-18 в 1 мин. При интенсивной мышечной нагрузке MOB может достигать 100 л. Максимальная вентиляция
легких (МВЛ) - это объем воздуха, который проходит через легкие за определенный промежуток времени при максимально возможной глубине и частоте дыхания. МВЛ
может достигать у молодого человека 120-150 л/мин, а у спортсменов - 180 л/мин, он
зависит от возраста, роста, пола. При прочих равных условиях МВЛ характеризует проходимость дыхательных путей, а также упругость грудной клетки и растяжимость
легких. Газообмен в легком, естественно, ведет к изменению газового состава в легком
по сравнению с составом атмосферного воздуха. В покое человек потребляет около
250 мл 02 и выделяет около 230 мл С02. Поэтому в альвеолярном воздухе уменьшается количество 02 и увеличивается - С02. Изменения содержания 02 и С02 в альвеолярной смеси газов являются следствием потребления организмом 02 и выделения С02.
В выдыхаемом воздухе количество 02 несколько возрастает, а С02 уменьшается по
сравнению с альвеолярной газовой смесью вследствие того, что к ней добавляется воздух воздухоносного пути, не участвующий в газообмене и, естественно, содержащий С02 и 02 в таких же количествах, как и атмосферный воздух. Азот в газообмене не участвует, некоторое увеличение содержания его в альвеолярном воздухе является относительным: объем выдыхаемого воздуха несколько меньше объема вдыхаемого. Это объясняется тем, что С02 выделяется из организма несколько меньше, нежели потребляется 02, из-за различного содержания углерода и кислорода в различных окисляемых вещест
1. Раздражимость (реактивность) клеток - это их способность (свойство) активно отвечать на внешнее воздействие той или иной формой деятельности, например усилением метаболизма и роста, ускорением деления, выбросом секрета, движением, электрическим импульсом.
Возбудимость - способность клеток отвечать не действие раздражителя возбуждением (т.е.генерацией потенциала действия). К возбудимым тканям относятся нервная и мышечная.
Возбуждение - ответ возбудимой клетки на действие раздражителя (потенциал действия).
Клетки, способные к возбуждению, - мышечные, нервные, железистые - называют возбудимыми. К возбудимым клеткам, т. е. к обладающим возбудимостью, относятся и элементы сенсорных рецепторов - нервные окончания и специальные рецепторные клетки. Возбудимость всех этих клеток обеспечивает реактивность макроорганизмов. Возбудимость обнаруживается и у некоторых одноклеточных организмов.
РАЗДРАЖИТЕЛЬ-стимул, любое воздействие, способное вызвать биол. реакцию живой ткани, изменение её структуры и функции. Реакция ткани на Р. наз. раздражением.
В качестве внешних воздействий, вызывающих возбуждение, могут выступать раздражители: стимулы, любые воздействия, способные вызвать биол. реакцию живой ткани, изменение её структуры и функции. 1) химический, электрический, механический и др., (2) пороговый, сверхпороговый, подпороговый; (3) адекватный и неадекватный.
Адекватный раздражитель соответствует данному виду клеток; он вызывает возбуждение даже при очень малой энергии (дозе) воздействия. Таков свет - для фоторецепторов, звук - для слуховых рецепторов, пахучие вещества - для обонятельных рецепторов и т. д. Для нервных и мышечных клеток многоклеточных организмов адекватными раздражителями являются электрические токи и некоторые химические агенты, продуцируемые другими клетками. Все прочие раздражители называют неадекватными.
Минимальная энергия (сила) раздражителя, необходимая для возбуждения клетки, называется пороговой (порогом). В случае неадекватных раздражителей (например, механического воздействия на фоторецепторы или нервные волокна) она на много порядков превышает пороговую энергию для адекватных раздражителей. Возбудимость по отношению к раздражителю измеряют порогом раздражения; возбудимость обратно пропорциональна величине порога.
Возбуждение, возникнув в точке действия раздражителя, во многих случаях способно распространяться, охватывая всю клетку. Это тесно связано с электрическим ответом и имеет большое значение в деятельности нервной системы и особенно ее проводящих путей (нервная сигнализация).
Возбудимым клеткам при отсутствии достаточных раздражителей свойственно состояние физиологического покоя, которое, конечно, не равно полной бездеятельности, ибо сопряжено с текущим метаболизмом.
Некоторые внешние воздействия могут вызывать в клетках реакции с отрицательным знаком (уменьшение метаболизма, роста, снижение возбудимости по отношению к раздражителям). Такие реакции называют торможением. Торможение может вызываться как воздействиями из внешней среды, так и влияниями со стороны других клеток организма.
2. Все биологические мембраны имеют общие структурные особенности и свойства. В настоящее время общепринята жидкостно-мозаичная модель строения мембраны.
Основу мембраны составляет липидный бислой, образованный в основном фосфолипидами. Фосфолипиды - триглицериды, у которых один остаток жирной кислоты замещен на остаток фосфорной кислоты; участок молекулы, в котором находится остаток фосфорной кислоты, называют гидрофильной головкой, участки, в которых находятся остатки жирных кислот - гидрофобными хвостами. В мембране фосфолипиды располагаются строго упорядоченно: гидрофобные хвосты молекул обращены друг к другу, а гидрофильные головки - наружу, к воде.
Помимо липидов в состав мембраны входят белки (в среднем ≈ 60%). Они определяют большинство специфических функций мембраны (транспорт определенных молекул, катализ реакций, получение и преобразование сигналов из окружающей среды и др.).
Различают: 1) периферические белки (расположены на наружной или внутренней поверхности липидного бислоя), 2) полуинтегральные белки (погружены в липидный бислой на различную глубину), 3) интегральные, или трансмембранные, белки (пронизывают мембрану насквозь, контактируя при этом и с наружной, и с внутренней средой клетки).
Интегральные белки в ряде случаев называют каналообразующими, или канальными, так как их можно рассматривать как гидрофильные каналы, по которым в клетку проходят полярные молекулы (липидный компонент мембраны их бы не пропустил).
Строение мембраны: А - гидрофильная головка фосфолипида; В - гидрофобные хвостики фосфолипида; 1 - гидрофобные участки белков Е и F; 2 - гидрофильные участки белка F; 3 - разветвленная олигосахаридная цепь, присоединенная к липиду в молекуле гликолипида (гликолипиды встречаются реже, чем гликопротеины); 4 - разветвленная олигосахаридная цепь, присоединенная к белку в молекуле гликопротеина; 5 - гидрофильный канал (функционирует как пора, через которую могут проходить ионы и некоторые полярные молекулы).
В состав мембраны могут входить углеводы (до 10%). Углеводный компонент мембран представлен олигосахаридными или полисахаридными цепями, связанными с молекулами белков (гликопротеины) или липидов (гликолипиды). В основном углеводы располагаются на наружной поверхности мембраны. Углеводы обеспечивают рецепторные функции мембраны. В животных клетках гликопротеины образуют надмембранный комплекс - гликокаликс, имеющий толщину несколько десятков нанометров. В нем располагаются многие рецепторы клетки, с его помощью происходит адгезия клеток.
Молекулы белков, углеводов и липидов подвижны, способны перемещаться в плоскости мембраны. Толщина плазматической мембраны - примерно 7,5 нм.
Функции мембран: 1.отделение клеточного содержимого от внешней среды,2.регуляция обмена веществ между клеткой и средой,3.деление клетки на компартаменты ("отсеки"),4.место локализации "ферментативных конвейеров",5.обеспечение связи между клетками в тканях многоклеточных организмов (адгезия),6.распознавание сигналов.
Важнейшее свойство мембран - избирательная проницаемость, т.е. мембраны хорошо проницаемы для одних веществ или молекул и плохо проницаемы (или совсем непроницаемы) для других. Это свойство лежит в основе регуляторной функции мембран, обеспечивающей обмен веществ между клеткой и внешней средой.
3. Процесс прохождения веществ через клеточную мембрану называют транспортом веществ. Различают: 1) пассивный транспорт - процесс прохождения веществ, идущий без затрат энергии; 2) активный транспорт - процесс прохождения веществ, идущий с затратами энергии. 3)транспорт с изменением архитектуры мембраны (экзоцитоз,эндоцитоз) или без изменен структ мембр (все остальн виды транспорта).
4) это транспорт, сопряженный с переносом двух веществ (котранспорт), который может протекать по типу симпорта (два вещества идут воднои направлении - например Na + глюкоза) или по типу антипорта (одно вещество идет в клетку, второе-из клетки или наоборот-Nа К). Антипод котранспорта - обычный транспорт, или унипорт, т. е. когда переносится одно вещество, например, молекулы глюкозы.
1-При пассивном транспорте вещества перемещаются из области с более высокой концентрацией в область с более низкой, т.е. по градиенту концентрации. В любом растворе имеются молекулы растворителя и растворенного вещества. Процесс перемещения молекул растворенного вещества называют диффузией, перемещения молекул растворителя - осмосом. Если молекула заряжена, то на ее транспорт влияет и электрический градиент. Поэтому часто говорят об электрохимическом градиенте, объединяя оба градиента вместе. Скорость транспорта зависит от величины градиента.
Можно выделить следующие виды пассивного транспорта: 1) простая диффузия - транспорт веществ непосредственно через липидный бислой (кислород, углекислый газ); 2) диффузия через мембранные каналы - транспорт через каналообразующие белки (Na+, K+, Ca2+, Cl-); 3) облегченная диффузия - транспорт веществ с помощью специальных транспортных белков, каждый из которых отвечает за перемещение определенных молекул или групп родственных молекул (глюкоза, аминокислоты, нуклеотиды); 4) осмос - транспорт молекул воды (во всех биологических системах растворителем является именно вода).
2-Необходимость активного транспорта возникает тогда, когда нужно обеспечить перенос через мембрану молекул против электрохимического градиента. Этот транспорт осуществляется особыми белками-переносчиками, деятельность которых требует затрат энергии. Источником энергии служат молекулы АТФ.
Na+/К+-насос (натрий-калиевый насос).Работа Na+/К+-насоса. Для нормального функционирования клетка должна поддерживать определенное соотношение ионов К+ и Na+ в цитоплазме и во внешней среде. Концентрация К+ внутри клетки должна быть значительно выше, чем за ее пределами, а Na+ - наоборот. Na+ и К+ могут свободно диффундировать через мембранные поры.
Na+/К+-насос противодействует выравниванию концентраций этих ионов и активно перекачивает Na+ из клетки, а K+ в клетку. Na+/К+-насос представляет собой трансмембранный белок, способный к конформационным изменениям, вследствие чего он может присоединять как K+, так и Na+.
Цикл работы Na+/К+-насоса можно разделить на следующие фазы: 1) присоединение Na+ с внутренней стороны мембраны, 2) фосфорилирование белка-насоса, 3) высвобождение Na+ во внеклеточном пространстве, 4) присоединение K+ с внешней стороны мембраны, 5) дефосфорилирование белка-насоса, 6) высвобождение K+ во внутриклеточном пространстве. На работу натрий-калиевого насоса тратится почти треть всей энергии, необходимой для жизнедеятельности клетки.
За один цикл работы насос выкачивает из клетки 3Na+ и закачивает 2К+.
3-Эндоцитоз- процесс поглощения клеткой крупных частиц и макромолекул. Различают два типа эндоцитоза: 1) фагоцитоз - захват и поглощение крупных частиц (клеток, частей клеток, макромолекул) и 2) пиноцитоз - захват и поглощение жидкого материала (раствор, коллоидный раствор, суспензия). Явление фагоцитоза открыто И.И.
Мечниковым в 1882 г. При эндоцитозе плазматическая мембрана образует впячивание, края ее сливаются, и происходит отшнуровывание в цитоплазму структур, отграниченных от цитоплазмы одиночной мембраной. К фагоцитозу способны многие простейшие, некоторые лейкоциты. Пиноцитоз наблюдается в эпителиальных клетках кишечника, в эндотелии кровеносных капилляров.
Экзоцитоз - процесс, обратный эндоцитозу: выведение различных веществ из клетки. При экзоцитозе мембрана пузырька сливается с наружной цитоплазматической мембраной, содержимое везикулы выводится за пределы клетки, а ее мембрана включается в состав наружной цитоплазматической мембраны. Таким способом из клеток желез внутренней секреции выводятся гормоны, у простейших - непереваренные остатки пищи.
Ионные каналы - это интегральные белки мембраны, которые выполняют функцию транспортирующей частицы для соответствующего иона. за счет внутриканально расположенных заряженных частиц Каждый ионный канал имеет устье, селективный фильтр, ворота и механизм управления воротами. Часть каналов управляется за счет разности потенциалов на мембране величины мембранного потенциала либо открывает ворота каналов, либо держит их закрытыми.
Второй вариант ионных каналов - рецепторуправляемые каналы: в этом случае ворота каналов управляются за счет рецептора, расположенного на поверхности мембраны: при взаимодействии медиатора с этим рецептором может происходить открытие ионных каналов. Натриевые каналы имеют устья, селективный фильтр, воротный механизм. Ворота у них двух типов - активационные (м-ворота) и инактивационные (п-ворота).
При снижении МП (например, до 60 мВ) активационные ворота открываются и впускают ионы натрия в клетку, но вскоре начинают закрываться инактивационные ворота (происходит инактивация натриевых каналов). Некоторое время спустя закрываются активационные ворота, открываются инактивационные ворота, и канал готов к новому циклу. Канал блокируется тетродотоксином, местными анестетиками (новокаином, другими веществами).
Это используется в медицинской практике. Калиевые каналы тоже достаточно селективны - в основном пропускают ионы калия. Они блокируются тетраэтиламмонием. Процессы инактивации у них выражены слабо. Кальциевые каналы - имеют все атрибуты ионного канала (устья, воротный механизм, фильтр).
Блокируются ионами марганца, никеля, кадмия (двухвалентные ионы), а также лекарственными веществами - верапамилом, нифедипином, дильтиаземом, которые используются в клинической практике.
4. Возбудимые ткани и их общие свойства
Возбудимые ткани - это нервная, мышечная и железистая структуры, которые способны спонтанно или в ответ на действие раздражителя возбуждаться. Возбуждение - это генерация потенциала действия (ПД) + распространение ПД + специфический ответ ткани на этот потенциал, например, сокращение, выделение секрета, выделение кванта медиатора.
Свойства возбудимых тканей и показатели, их характеризующие:
Свойства
1. Возбудимость - способность возбуждаться
2. Проводимость - способность проводить возбуждение, т.е. проводить ПД
3. Сократимость - способность развивать силу или напряжение при возбуждении
4. Лабильность - или функциональная подвижность - способность к ритмической активности
5. Способность выделять секрет (секреторная активность), медиатор
Показатели
1.Порог раздражения, реобаза, хронаксия, длительность абсолютной рефракторной фазы, скорость аккомодации.
2.Скорость проведения ПД, например, у нерва она может достигать 120 м/с (около 600 км/час).
3.Максимальная величина силы (напряжения), развиваемая при возбуждении.
4.Максимальное число возбуждений в единицу времени, например, нерв способен в 1с генерировать 1000 ПД.
5.Электрические явления в возбудимых тканях
Закон силы-длительности: раздражающее действие постоянного тока зависит не только от его величины, но и от времени, в течение которого он действует. Чем больше ток, тем меньше времени он должен действовать для возникновения возбуждения.
Исследования зависимости силы-длительности показали, что последняя имеет гиперболический характер. Из этого следует, что ток ниже некоторой минимальной величины не вызывает возбуждение, как бы длительно он не действовал, и чем короче импульсы тока, тем меньшую раздражающую способность они имеют. Причиной такой" зависимости является мембранная емкость.
Очень "короткие" токи просто не успевают разрядить эту емкость до критического уровня деполяризации. Минимальная величина тока, способная вызвать возбуждение при неограниченно длительном его действии, называется реобазой. Время, в течение которого действует ток, равный реобазе, и вызывает возбуждение, называется полезным временем.
В связи с тем, что определение этого времени затруднено, было введено понятие хронаксия- минимальное время, в течение которого ток, равный двум реобазам, должен действовать на ткань, чтобы вызвать ответную реакцию. Определение хронаксии - хронаксиметрия - находит применение в клинике. Электрический ток, приложенный к мышце, проходит через как мышечные, так и нервные волокна и их окончания, находящиеся в этой мышце.
Так как хронаксия нервных волокон значительно меньше хронаксии мышечных волокон, то при исследовании хронаксии мышцы практически получают хронаксию нервных волокон.
Если нерв поврежден или произошла гибель соответствующих мотонейронов спинного мозга (это имеет место при полимиелите и некоторых других заболеваниях), то происходит перерождение нервных волокон и тогда определяется хронаксия уже мышечных волокон, которая имеет большую величину, чем нервных волокон.
Закон силы. Чтобы возникло возбуждение, раздражитель должен быть достаточно сильным - пороговым или выше порогового. Обычно под термином "порог" понимается минимальная сила раздражителя, которая способна вызвать возбуждение. Например, чтобы вызвать возбуждение нейрона при МП = -70 мВ и КУД = -50 мВ, пороговая сила должна быть равной -20 мВ. Меньшая сила раздражителя ответа вызывать не будет.
Одно важное следствие этого закона - введено понятие "порог раздражения" (минимальная сила раздражителя, способного вызвать возбуждение). Определяя этот показатель,
Закон "все или ничего": под пороговые раздражители не вызывают ответной реакции ("ничего"), на пороговые раздражители возникает максимальная ответная реакция ("все"). По закону "все или ничего" сокращаются сердечная мышца и одиночное мышечное волокно. Закон "все или ничего" не абсолютен.
Во-первых, на раздражители подпороговой силы не возникает видимой ответной реакции, но в ткани происходят изменения мембранного потенциала покоя в виде возникновения местного возбуждения (локального ответа). Во-вторых, сердечная мышца, растянутая кровью, при наполнении ею камер сердца, реагирует по закону "все или ничего", но амплитуда ее сокращения будет больше по сравнению с сокращением сердечной мышцы, не растянутой кровью.
5. Мембранный потенциал и его происхождение
МП, или потенциал покоя, - это разность потенциалов между наружной и внутренней поверхностями мембраны в условиях покоя. В среднем у клеток возбудимых тканей он достигает 50-80 мВ, со знаком "-" внутри клетки. Обусловлен преимущественно ионами калия. Как известно, в клетках возбудимых тканей концентрация ионов калия достигает 150 ммоль/л, в среде - 4-5 ммоль (ионов калия намного больше в клетке, чем в среде).
Поэтому по градиенту концентрации калий может выходить из клетки, и это происходит с участием калиевых каналов, часть которых открыта в условиях покоя. В результате из-за того, что мембрана непроницаема для анионов клетки (глутамат, аспартат, органические фосфаты), на внутренней поверхности клетки образуется избыток отрицательно заряженных частиц, а на наружной - избыток положительно заряженных частиц. Возникает разность потенциалов.
Чем выше концентрация калия в среде - тем меньше это отношение, тем меньше величина мембранного потенциала. Однако расчетная величина, как правило, ниже реальной. Например, по расчетам МП должен быть -90 мВ, а реально -70 мВ. Это расхождение обусловлено тем, что ионы натрия и хлора тоже вносят свой вклад в создание МП. В частности, известно, что натрия больше в среде (140 ммоль/л против 14 ммоль/л внутриклеточной).
Поэтому натрий может войти в клетку. Но большая часть натриевых каналов в условиях покоя закрыта. Поэтому в клетку входит лишь небольшая часть ионов натрия. Но и этого достаточно, чтобы хотя бы частично компенсировать избыток анионов. Ионы хлора, наоборот, входят в клетку (частично) и вносят отрицательные заряды. В итоге величина мембранного потенциала определяется в основном калием, а также натрием и хлором.
Для того чтобы МП поддерживался на постоянном уровне, необходимо поддержание ионного гетсрогенитета - ионной асимметрии. Для этого, в частности, служит калий-натриевый насос (и хлорный), который восстанавливает ионную асимметрию, особенно после акта возбуждения. Доказательством калиевой природы МП является наличие зависимости: чем выше концентрация калия в среде, тем меньше величина МП. Для дальнейшего изложения важно понятие: деполяризация (уменьшение МП, например, от минус 90 мВ до минус 70 мВ) и гиперполяризация - противоположное явление.
6. Потенциал действия - это кратковременное изменение разности потенциала между наружной и внутренней поверхностями мембраны (или между двумя точками ткани), возникающее в момент возбуждения. Потенциалы действия могут различаться по своим параметрам в зависимости от типа клетки и даже на различных участках мембраны одной и той же клетки. Наиболее характерный пример различий: потенциал действия сердечной мышцы и потенциал действия большинства нейронов. Тем не менее, в основе любого потенциала действия лежат следующие явления:
1-Мембрана живой клетки поляризована - её внутренняя поверхность заряжена отрицательно по отношению к внешней благодаря тому, что в растворе возле её внешней поверхности находится бо́льшее количество положительно заряженных частиц (катионов), а возле внутренней поверхности - бо́льшее количество отрицательно заряженных частиц (анионов).
2-Мембрана обладает избирательной проницаемостью - её проницаемость для различных частиц (атомов или молекул) зависит от их размеров, электрического заряда и химических свойств.
3-Мембрана возбудимой клетки способна быстро менять свою проницаемостъ для определённого вида катионов, вызывая переход положительного заряда с внешней стороны на внутреннюю.
Первые два свойства характерны для всех живых клеток. Третье же является особенностью клеток возбудимых тканей и причиной, по которой их мембраны способны генерировать и проводить потенциалы действия.
Фазы потенциала действия
1.Предспайк - процесс медленной деполяризации мембраны до критического уровня деполяризации (местное возбуждение, локальный ответ).
2.Пиковый потенциал, или спайк, состоящий из восходящей части (деполяризация мембраны) и нисходящей части (реполяризация мембраны). В нем выделяют следующие фазы или компоненты: а. Локальный ответ - начальный этап деполяризации. б. Фазу деполяризации - быстрое снижение мембранного потенциала до нуля и перезарядка мембраны (реверсия, или овершут). в. Фазу реполяризании - восстановление исходного уровня мембранного потенциала;
в ней выделяют фазу быстрой реноляризации и фазу медленной реполяризации, в свою очередь, фаза медленной реполяризации представлена следовыми процессами (потенциалами):следовая негативность (следовая деполяризация) и следовая позитивность (следовая гиперполяризация).
3.Отрицательный следовой потенциал - от критического уровня деполяризации до исходного уровня поляризации мембраны (следовая деполяризация).
4.Положительный следовой потенциал - увеличение мембранного потенциала и постепенное возвращение его к исходной величине (следовая гиперполяризация).
Форма потенциала действия (при внутриклеточном отведении) зависит от вида возбудимой ткани: у аксона нейрона, скелетной мышцы - пикообразные потенциалы, у гладких мышц в одних случаях пикообразные, в других - платообразные (например, потенциал действия гладких мышц матки беременной женщины - платообразный, а длительность его составляет почти 1 минуту). У сердечной мышцы потенциал действия имеет платообразную форму.
7. Возбудимость - способность живых воспринимать изменения внешней среды и отвечать на эти изменения (раздражения) реакцией возбуждения. Возбуд связана с существованием в клеточной мембране особых молекулярных структур, обладающих специфической чувствительностью к действию тех или иных раздражителей: электрическому току, химическим, механическим, термическим и другим воздействиям. Уровень возбудимости клетки зависит от фазы ПД. В фазу локального ответа возбудимость возрастает. Это фазу возбудимости называют латентным дополнением.
В фазу реполяризации ПД, когда открываются все натриевые каналы и ионы натрия лавинообразно устремляются в клетку, никакой даже сверхсильный раздражитель не может стимулировать этот процесс. Поэтому фазе деполяризации соответствует фаза полной невозбудимости или абсолютной рефрактерности.
В фазе реполяризации все большая часть натриевых каналов закрывается. Однако они могут вновь открываться при действии сверхпорогового раздражителя. Т.е. возбудимость начинает вновь повышаться. Этому соответствует фаза относительной невозбудимости или относительной рефрактерности.
Во время следовой деполяризации МП находится у критического уровня, поэтому даже допороговые стимулы могут вызвать возбуждение клетки. Следовательно в этот момент ее возбудимость повышена. Эта фаза называется фазой экзальтации или супернормальной возбудимости.
В момент следовой гиперполяризации МП выше исходного уровня, т.е. Дальше КУД и ее возбудимость снижена. Она находится в фазе субнормальной возбудимости. Явление аккомодации также связано с изменением проводимости ионных каналов. Если деполяризующий ток нарастает медленно, то это приводит к частичной инактивации натриевых, и активации калиевых каналов. Поэтому развития ПД не происходит.
8. Не́рвные воло́кна - отростки нейронов, покрытые глиальными оболочками.
В различных отделах нервной системы оболочки нервных волокон значительно отличаются по своему строению, что лежит в основе деления всех волокон на миелиновые и безмиелиновые. Те и другие состоят из отростка нервной клетки, лежащего в центре волокна, и поэтому называемого осевым цилиндром (аксоном), и окружающей его глиальной оболочки.
В зависимости от интенсивности функциональной нагрузки нейроны формируют тот или иной тип волокна. Для соматического отдела нервной системы, иннервирующей скелетную мускулатуру, обладающую высокой степенью функциональной нагрузки, характерен миелиновый тип нервных волокон, а для вегетативного отдела, иннервирующего внутренние органы - безмиелиновый тип.
Нервные волокна классифицируются по: 1.длительности потенциала действия; 2.строению (диаметру) волокна; 3.скорости проведения возбуждения.
Выделяют следующие группы нервных волокон:1.группа А (альфа, бета, гамма, дельта) - самый короткий потенциал действия, самая толстая миелиновая оболочка, самая высокая скорость проведения возбуждения; 2.группа В - миелиновая оболочка менее выражена; 3.группа С - без миелиновой оболочки.
Особенности проведения возбуждения по миелиновым и безмиелиновым нервным волокнам:
миелиновые волокна- имеют оболочку обладающую высоким сопротивлением, электрогенные свойства только в перехватах Ранвье. Под действием раздражителя возбуждение возникает в ближайшем перехвате Ранвье. Соседний перехват в состоянии поляризации. Возникающий ток вызывает деполяризацию соседнего перехвата.
В перехватах Ранвье высокая плотность Nа-каналов, поэтому в каждом следующем перехвате возникает чуть больший (по амплитуде) потенциал действия, за счет этого возбуждение распространяется без декремента и может перескакивать через несколько перехватов. Это сальтаторная теория Тасаки. Доказательство теории - в нервное волокно вводили препараты, блокирующие несколько перехватов, но проведение возбуждения регистрировалось и после этого.
Это высоко надежный и выгодный способ, т. к. устраняются небольшие повреждения, увеличивается скорость проведения возбуждения, уменьшаются энергетические затраты;
Безмиелиновые волокна- поверхность обладает электрогенными свойствами на всем протяжении. Поэтому малые круговые токи возникают на расстоянии в несколько микрометров. Возбуждение имеет вид постоянно бегущей волны.
Этот способ менее выгоден: большие затраты энергии (на работу Nа-К-насоса), меньшая скорость проведения возбуждения.
Существует три закона проведения раздражения по нервному волокну.
Закон анатомо-физиологической целостности. Проведение импульсов по нервному волокну возможно лишь в том случае, если не нарушена его целостность.
Закон изолированного проведения возбуждения. Существует ряд особенностей распространения возбуждения в периферических, мякотных и безмякотных нервных волокнах. В периферических нервных волокнах возбуждение передается только вдоль нервного волокна, но не передается на соседние, которые находятся в одном и том же нервном стволе. В мякотных нервных волокнах роль изолятора выполняет миелиновая оболочка. За счет миелина увеличивается удельное сопротивление и происходит уменьшение электрической емкости оболочки. В безмякотных нервных волокнах возбуждение передается изолированно.
Закон двустороннего проведения возбуждения. Нервное волокно проводит нервные импульсы в двух направлениях - центростремительно и центробежно.
9. Физиологические свойства мышц.
Возбудимость - способность приходить в состояние возбуждения при действии раздражителей. Проводимость - способность проводить возбуждение. Сократимость - способность мышцы изменять свою длину или напряжение в ответ на действие раздражителя. Лабильность - лабильность мышцы равна 200-300 Гц.
При непосредственном раздражении мышцы (прямое раздражение) или опосредовано через иннервирующий ее двигательный нерв (непрямое раздражение) одиночным стимулом возникает одиночное мышечное сокращение, в котором выделяют три фазы: латентный период - время от начала действия раздражителя до начала ответной реакции; фаза сокращения (фаза укорочения); фаза расслабления.
Различают два типа мышечных сокращений. Если оба конца мышцы неподвижно закреплены, происходит изометрическое сокращение, и при неизменной длине напряжение увеличивается. Если один конец мышцы свободен, то в процессе сокращения длина мышцы уменьшится, а напряжение не изменяется - такое сокращение называют изотоническим; в организме такие сокращения имеют большее значение для выполнения любых движений.
Тетанус, тетаническое мышечное сокращение- состояние длительного сокращения, непрерывного напряжения мышцы, возникающее при поступлении к ней через мотонейрон нервных импульсов с высокой частотой. При этом расслабления между последовательными одиночными сокращениями не происходит и возникает их суммация, приводящая к стойкому максимальному сокращению мышцы.
Различают зубчатый и гладкий тетанус. При зубчатом тетанусе каждый последующий нервный импульс воздействует на начавшую расслабляться мышцу, при этом происходит неполная суммация сокращений. При гладком тетанусе, имеющем бо́льшую амплитуду, воздействие импульса происходит в конце периода укорочения, что приводит к полной суммации сокращений.
10. Особенности строения и передачи возбуждения в нервно-мышечных синапсах. Современная теория мышечного сокращения и расслабления.
Нервно-мышечный синапс состоит из трех основных структур: пресинаптической мембраны, синаптической щели и постсинаптической мембраны. Пресинаптическая мембрана покрывает нервное окончание, а постсинаптическая - эффекторную клетку. Между ними находится синаптическая щель. Постсинаптическая мембрана отличается от пресинаптической тем, что имеет белковые хеморецепторы, чувствительные не только к медиаторам, гормонам, но и к лекарственным и токсическим веществам. Строение нервно-мышечного синапса обусловливает его физиологические свойства:
1) односторонее проведение возбуждения (от пресинаптической к постсинаптической мембране) при наличии чувствительных к медиатору рецепторов только в постсинаптической мембране;
2) синаптическая задержка проведения возбуждения, связанная с малой скоростью диффузии медиатора в сравнении со скоростью нервного импульса;
3) низкая лабильность и высокая усталость синапса;
4) высокая избирательная чувствительность синапса к химическим веществам.
Передача возбуждения.
Возбуждение распространяется по нервному волокну в виде потенциала действия (нервного импульса), достигнув пресинаптической мембраны, вызывает ее деполяризацию, что приводит к открытию кальциевых каналов. Ионы Са2+ входят внутрь нервного окончания и способствуют освобождению медиатора из синаптических пузырьков и выходу его в синаптическую щель.
Медиатор быстро диффундирует через щель и воздействует на постсинаптическую мембрану - взаимодействует с рецептором (ацетилхолин - с холинорецептором, норадреналин - с адренорецептором и т. д.). На взаимодействие медиатора с рецептором мембрана отвечает изменением проницаемости для ионов Nа+ и К+, что приводит к ее деполяризации, возникновению потенциала действия, генерации возбудительного постсинаптического потенциала.
Под влиянием этого потенциала происходит деполяризация соседних с синапсом участков мембраны. Таким образом потенциал действия распространяется по всему органу. Медиаторы выбрасываются в синаптическую щель не только при возбуждении, но и в покое.
Синапс - это структурно-функциональное образование, обеспечивающее переход возбуждения или торможения с окончания нервного волокна на иннер-вирующую клетку.
Структура синапса:
1) пресинаптическая мембрана (электрогенная мембрана в терминале аксона, образует синапс на мышечной клетке);
2) постсинаптическая мембрана (электрогенная мембрана иннервируемой клетки, на которой образован синапс);
3) синаптическая щель (пространство между преси-наптической и постсинаптической мембраной, заполнена жидкостью, которая по составу напоминает плазму крови).
Существует несколько классификаций синапсов.
1. По локализации:
1) центральные синапсы;
2) периферические синапсы.
2. Функциональная классификация синапсов:
1) возбуждающие синапсы;
2) тормозящие синапсы.
3. По механизмам передачи возбуждения в синапсах:
1) химические;
2) электрические.
(обязательно)
Мионевральный (нервно-мышечный) синапс - образован аксоном мотонейрона и мышечной клеткой.
Нервный импульс возникает в тригерной зоне нейрона, по аксону направляется к иннервируемой мышце, достигает терминали аксона и при этом деполяризует пресинаптическую мембрану.
После этого открываются натриевые и кальциевые каналы, и ионы Ca из среды, окружающей синапс, входят внутрь терминали аксона. При этом процессе броуновское движение везикул упорядочивается по направления к пресинаптической мембране. Ионы Ca стимулируют движение везикул. Достигая пресинап-тическую мембрану, везикулы разрываются, и освобождается ацетилхолин (4 иона Ca высвобождают 1 квант ацетилхолина).
Синаптическая щель заполнена жидкостью, которая по составу напоминает плазму крови, через нее происходит диффузия АХ с преси-наптической мембраны на постсинаптическую, но ее скорость очень мала. Кроме того, диффузия возможна еще и по фиброзным нитям, которые находятся в синаптической щели. После диффузии АХ начинает взаимодействовать с хеморецепторами (ХР) и холи-нэстеразой (ХЭ), которые находятся на постсинапти-ческой мембране.
Холинорецептор выполняет рецепторную функцию, а холинэстераза выполняет ферментативную функцию. На постсинаптической мембране они расположены следующим образом:
ХР-ХЭ-ХР-ХЭ-ХР-ХЭ.
ХР + АХ = МПКП - миниатюрные потенциалы концевой пластины.
Затем происходит суммация МПКП. В результате суммации образуется ВПСП - возбуждающий постсинаптический потенциал. Постсинаптическая мембрана за счет ВПСП заряжается отрицательно, а на участке, где нет синапса (мышечного волокна), заряд положительный. Возникает разность потенциалов, образуется потенциал действия, который перемещается по проводящей системе мышечного волокна.
ХЭ + АХ = разрушение АХ до холина и уксусной кислоты.
В состоянии относительного физиологического покоя синапс находятся в фоновой биоэлектрической активности. Ее значение заключается в том, что она повышает готовность синапса к проведению нервного импульса тем самым значительно облегчает передачу нервного возбуждения по синапсу. В состоянии покоя 1-2 пузырька в терминале аксона могут случайно подойти к пресинаптической мембране, в результате чего вступят с ней в контакт.
Везикула при контакте с пресинап-тической мембраной лопается, и ее содержимое в виде 1 кванта АХ поступает в синаптическую щель, попадая при этом на постсинаптическую мембрану, где будет образовываться МПКН.
11. Особенности строения и функционирования гладких мышц
Гладкие мышцы состоят из клеток веретенообразной формы. Клетки располагаются в составе мышечных пучков и тесно прилегают друг к другу. Мембраны прилежащих клеток образуют нексусы, которые служат для передачи возбуждения с клетки на клетку. Гладкие мышечные клетки содержат миофиламенты актина и миозина, которые располагаются здесь менее упорядоченно, чем в волокнах скелетной мышцы. Саркоплазматическая сеть в гладкой мышце менее развита, чем в скелетной.
Введение
Раздражимость - это общее свойство тканей реагировать на различные раздражители.
Возбудимость - более узкое понятие, которое характеризует свойство тканей возбуждаться в ответ на действие раздражителя. Ткани, обладающие этим свойством, называются возбудимыми. Проявляется возбуждение возникновением потенциала действия. В основе возбуждения лежат сложные физико-химические процессы. Начальный пусковой момент возбуждения - изменения ионной проницаемости и электрических потенциалов мембраны.
Возбудимые ткани имеют ряд свойств: раздражимость - способность тканей воспринимать раздражение, возбудимость - способность тканей реагировать возбуждением на раздражение, проводимость - способность распространять возбуждение, лабильность - скорость протекания элементарных циклов возбуждения. Лабильность отражает время, в течение которого ткань восстанавливает работоспособность после очередного цикла возбуждения.
Порог раздражения (в физиологии нервных и мышечных клеток), наименьшая сила раздражителя (обычно электрического тока), способная вызвать распространяющийся потенциал действия
Методы изучения описанных явлений разнообразны. Так, о возбудимости можно судить по наименьшей силе раздражителя, необходимой для возникновения той или иной рефлекторной реакции или по пороговой силе тока или пороговому сдвигу потенциала, достаточным для возникновения ПД. Здесь необходимо ввести такие понятия, как реобаза и хронаксия.
Реобаза (от греч. rheos - течение, поток и basis - ход, движение; основание), наименьшая сила постоянного электрического тока, вызывающая при достаточной длительности его действия возбуждение в живых тканях. Понятие реобазы и хронаксии ввёл в физиологию Л. Лапик в 1909, определяя зависимость между силой тока и длительностью его действия при изучении наименьшего (порогового) эффекта возбудимых тканей.
Реобаза, как и хронаксия, даёт представление о возбудимости тканей и органов по порогу силы и длительности действия раздражения. Реобаза соответствует порогу раздражения и выражается в вольтах или миллиамперах. Значение реобазы можно вычислить по формуле: i = a/t + b, где i - сила тока, t - длительность его действия, а и b - константы, определяемые свойствами ткани.
Константа b является Р., так как при длительном действии раздражающего тока отношение a/t будет очень мало и i практически равняется b. Р. нередко называются пороговые значения не только электрических, но и других раздражителей. Хронаксия (от греч. chronos - время и axia - цена, мера), наименьшее время действия на ткань постоянного электрического тока удвоенной пороговой силы (удвоенной реобазы), вызывающего возбуждение ткани.
Было также экспериментально установлено (голландский физик Л. Горвег, 1892, французский физиолог Ж. Вейс, 1901), что величина стимула, вызывающего возбуждающий эффект в тканях, находится в обратной зависимости от длительности его действия и графически выражается гиперболой - кривая <сила - время. Минимальная сила тока, которая при неограниченно долгом действии вызывает эффект возбуждения (реобаза), соответствует на рисунке отрезку OA (BC).
Наименьшее т. н. полезное время действия порогового раздража
ющего стимула соответствует отрезку OC (полезное потому, что дальнейшее увеличение времени действия тока не имеет значения для возникновения потенциала действия). При кратковременных раздражениях кривая силы - времени становится параллельной оси ординат, т. е. возбуждение не возникает при любой силе раздражителя.
Приближение кривой асимптотически к линии, параллельной абсциссе, не позволяет достаточно точно определять полезное время, т.к. незначительные отклонения реобазы, отражающие изменения функционального состояния биологических мембран в покое, сопровождаются значительными колебаниями времени раздражения.
В связи с этим Лапик предложил измерять другую условную величину - хронаксию, т. е. время действия раздражителя, равное двойной реобазе [на рисунке соответствует отрезку OD (EF)]. При данной величине раздражителя наименьшее время его действия, при котором возможен пороговый эффект, равно OF.
Установлено, что форма кривой, характеризующей возбудимость ткани в зависимости от интенсивности и длительности действия раздражителя, однотипна для самых разнообразных тканей. Различия между ними касаются только абсолютного значения соответствующих величин и, прежде всего, времени, т. е. возбудимые ткани отличаются друг от друга временной константой раздражения. Лабильность можно измерить, раздражая ткань электрическим током различной частоты.
Момент, когда ткань произойдёт преобразование ритма (ткань перестанет воспроизводить заданный ритм без изменений) и будет лабильностью данной ткани. Единицы её измерения - количество воспроизводимых импульсов за единицу времени [имп./сек.(мин.), и т. д. ]. Проводимость можно охарактеризовать расстоянием, преодолённым импульсом за единицу времени, то есть скоростью распространения импульса.
История вопроса.
Изучался этот вопрос давно. Многих учёных интересовал тот факт, что некоторые животные способны генерировать <электрический ток. Это явление было названо <животное электричество. К этому времени относится начало исследований итальянского физиолога и врача Л. Гальвани, заложивших основу учения о Б. п. Многолетний научный спор (1791-97) между Л. Гальвани и физиком А.
Вольта о природе <животного электричества завершился двумя крупными открытиями: были получены факты о существовании биоэлектрических явлений в живых тканях и открыт новый принцип получения электрического тока с помощью разнородных металлов - создан гальванический элемент (вольтов столб). Правильная оценка наблюдений Гальвани стала возможной лишь после применения достаточно чувствительных электроизмерительных приборов - гальванометров.
Первые такие исследования были проведены итальянским физиком К. Маттеуччи (1837). Систематическое изучение биопотенциалов было начато немецким физиологом Э. Дюбуа-Реймоном (1848), который доказал существование биопотенциалов в нервах и мышцах в покое и при возбуждении.
Но ему не удалось (в силу большой инерционности гальванометра) зарегистрировать быстрые, длящиеся тысячные доли секунды колебания биопотенциалов при проведении импульсов вдоль нервов и мышц. В 1886 немецкий физиолог Ю. Бернштейн проанализировал форму потенциала действия; французский учёный Э. Ж. Марей (1875) применил для записи колебаний потенциалов бьющегося сердца капиллярный электрометр; русский физиолог Н. Е.
Введенский использовал (1883) для прослушивания ритмических разрядов импульсов в нерве и мышце телефон, а голландский физиолог В. Эйнтховен (1903) ввёл в эксперимент и клиническую практику струнный гальванометр - высокочувствительный и малоинерционный прибор для регистрации электрических токов в тканях.
Значительный вклад в изучение биопотенциалов внесли русские физиологи: В. В. Правдич-Неминский (1913-21) впервые зарегистрировал электроэнцефалограмму, А. Ф. Самойлов (1929) исследовал природу нервно-мышечной передачи возбуждения, а Д. С. Воронцов (1932) открыл следовые колебания биопотенциалов, сопровождающие потенциал действия в нервных волокнах.
Дальнейший прогресс в изучении биопотенциалов был тесно связан с успехами электроники, позволившими применить в физиологическом эксперименте электронные усилители и осциллографы (работы американских физиологов Г. Бишопа, Дж. Эрлангера и Г. Гассера в 30-40-х гг. 20в.). Изучение биопотенциалов в отдельных клетках и волокнах стало возможным с разработкой микроэлектродной техники.
Важное значение для выяснения механизмов генерации биопотенциалов имело использование гигантских нервных волокон головоногих моллюсков, главным образом кальмара.
Диаметр этих волокон в 50 - 100 раз больше, чем у позвоночных животных, он достигает 0,5-1 мм, что позволяет вводить внутрь волокна микроэлектроды, инъецировать в протоплазму различные вещества и т.п. Изучение ионной проницаемости мембраны гигантских нервных волокон позволило английским физиологам А. Ходжкину, А. Хаксли и Б. Катцу (1947-52) сформулировать современную мембранную теорию возбуждения.
Потенциал покоя. Потенциал действия.
Потенциал покоя (ПП) - разность потенциалов между содержимым клетки (волокна) и внеклеточной жидкостью; скачок потенциала локализуется на поверхностной мембране, при этом её, внутренняя сторона заряжена электроотрицательно по отношению к наружной. Потенциал покоя обусловлен неравенством концентраций, ионов Na+, К+ и Cl- по обе стороны клеточной мембраны и неодинаковой её проницаемостью для этих ионов.
В нервных и мышечных клетках потенциал покоя участвует в поддержании состояния готовности молекулярной структуры мембраны к возбуждению в ответ на действие раздражителя. Все воздействия на клетку, вызывающие длительное стойкое снижение потенциала покоя.
(например, нарушение обмена веществ, повышение внеклеточного содержания ионов К+, действие сильного электрического тока и т.д.), ведут к снижению возбудимости клетки или к полной утрате ею способности к генерации потенциалов действия. У живых клеток в покое между внутренним содержимым клетки и наружным раствором существует разность потенциалов (ПП) порядка 60-90мв, которая локализована на поверхностной мембране.
Внутренняя сторона мембраны заряжена электроотрицательно по отношению к наружной.
Концентрация К+ в протоплазме примерно в 50 раз выше, чем во внеклеточной жидкости, поэтому, диффундируя из клетки, ионы выносят на наружную сторону мембраны положительные заряды, при этом внутренняя сторона мембраны, практически не проницаемой для крупных органических анионов, приобретает отрицательный потенциал.
Поскольку проницаемость мембраны в покое для Na+ примерно в 100 раз ниже, чем для К+, диффузия натрия из внеклеточной жидкости (где он является основным катионом) в протоплазму мала и лишь незначительно снижает ПП, обусловленный ионами К+. В скелетных мышечных волокнах в возникновении потенциала покоя важную роль играют также ионы Cl-, диффундирующие внутрь клетки.
Следствием ПП является ток покоя, регистрируемый между поврежденным и интактным участками нерва или мышцы при приложении отводящих электродов. Мембраны нервных и мышечных клеток (волокон) способны изменять ионную проницаемость в ответ на сдвиги мембранного потенциала.
При увеличении ПП (гиперполяризация мембраны) проницаемость поверхностных клеточных мембран для Na+ и К+ падает, а при уменьшении ПП (деполяризация) она возрастает, причём скорость изменений проницаемости для Na+ значительно превышает скорость увеличения проницаемости мембраны для К+.
Неравенство концентраций ионов К+ и Na+ (или Ca+) внутри и снаружи клетки (волокна) поддерживается специальным механизмом (т. н. <натриевым насосом), выталкивающим ионы Na+ из клетки и нагнетающим ионы К+ в протоплазму, требующим затраты энергии, которая черпается клеткой в процессах обмена веществ.
Работа таких механизмов обеспечивается, как правило, энергией, выделяемой при расщеплении аденозинтрифосфорной кислоты (АТФ); таким образом, ионные насосы одновременно выполняют функцию ферментов, расщепляющих АТФ и называемых АТФ-азами.
Активный перенос Na+ из клетки сопряжён с транспортом К+ в обратном направлении и осуществляется особой ферментной системой - транспортной Na, К, - стимулируемой аденозинтрифосфатазой, локализованной в клеточной мембране. Последняя, гидролизуя аденозинтрифосфорную кислоту (АТФ), высвобождает энергию, которая и затрачивается на активный перенос катионов. Работа насоса в целом зависит от уровня метаболизма клетки.